星期六, 14 11 月, 2026
Home Blog

食聰明藥就會專心?拆解濫用風險,認識腸腦軸與精神益生菌PS128

0

「聰明藥」這個詞,近年頻繁出現在家長群組與補習圈的討論中。
2026年,Netflix韓劇《鐵拳教育》上線後,劇中家長讓孩子服用「聰明藥」以求考上醫科的情節,亦在香港媒體掀起「食藥真的能變專心嗎」的討論。但戲劇終究是戲劇:專注力並不是單一開關,香港兒童及青少年的專注力不足/過度活躍症(ADHD)盛行率估計約6.4%,而睡眠、壓力與情緒狀態,亦可能影響孩子在課堂上的表現。本文將從聰明藥的真實身份、韓國、美國到香港的現況,談到近年備受關注的腸腦軸與精神益生菌研究,整理目前較完整的證據,並說明哪些結論現階段仍未能下。

一、「聰明藥」能提升專注力嗎?

聰明藥不是「健腦補品」,而是處方藥

「聰明藥」是坊間的通稱,多半指利他林(Ritalin,成分為哌醋甲酯)、專注達(Concerta)、阿得拉(Adderall,含安非他明)等治療ADHD的中樞神經興奮劑。這類藥物的作用與腦內多巴胺、去甲腎上腺素等神經傳導訊號有關。

在香港,利他林與專注達已根據《藥劑業及毒藥條例》註冊,並受《危險藥物條例》管制,必須憑醫生處方在註冊藥房配發;阿得拉則沒有在香港註冊,使用未註冊的ADHD藥物有可能觸犯香港法例。

沒有診斷的孩子,效果並未獲得證實

香港精神科專科醫生曾繁光指出,這類藥物只能讓患者的專注力回復至正常水平,對沒有病的人並無提升作用,並提醒切勿以身試藥;註冊藥劑師麥志偉亦表示,坊間俗稱的「聰明藥」並不能提升智商。

國際方面,韓國檀國大學教授林明浩指出,韓國及國際研究均未有證據顯示ADHD藥物能改善一般孩子的學習表現;精神科教授Lee Hae-guk則強調,這類藥物是用來治療已確診的精神疾病。換言之,ADHD藥物的作用是協助確診患者回復原有的執行功能,而非讓一般人變得「更聰明」。

風險:副作用、成癮與法律責任

常見副作用包括食慾減少、失眠、影響情緒與心臟問題;未經醫生評估自行服用,風險更難掌握。法律方面,這類藥物屬危險藥物,醫生處方上必須列明病人的身份證號碼及配發數量;非法管有危險藥物屬刑事罪行,而販運危險藥物一經定罪,最高可被罰款500萬元及判處終身監禁。韓國亦自2023年9月起,將ADHD藥物納入非醫療目的的非標示用藥禁令,並加強查處「智慧藥丸」廣告。

二、不只是韓劇情節:韓國處方量暴增2.4倍,香港亦有濫用傳聞

韓國:處方量五年內暴增

根據《韓國時報》報道,韓國食藥署公布的資料顯示,ADHD藥物處方量從2020年約3,771萬增至2024年的9,020萬,約為 4 年前的 2.4 倍,首爾江南區的用藥量居全國之首。報道指出,被當作讀書輔助而濫用的情況確實存在,但更常見的是擔心孩子成績的家長;一位首爾私立高中教師表示,這類藥物令孩子看起來較冷靜、專注,因此在家長之間快速流傳。

市場端亦出現警訊,食藥署在2024年10月15至25日、大學入學考試前的網上調查中,發現711則以「讀書藥」或「提升專注力藥物」名義非法販售ADHD藥物的帖文,並研判這些藥品極可能來自非法渠道。

美國:部分中學每4名學生就有1人濫用

美國的情況同樣值得警惕。2023年刊登於《美國醫學會期刊.網絡開放》的研究,揭露2005至2020年間收集的8、10及12年級學生數據,發現各中學濫用處方興奮劑的比率由0%至逾25%不等;在部分學校,每4名學生便有1人在過去一年曾非醫療使用ADHD藥物。

研究亦發現,在接受ADHD興奮劑治療的學生比例最高的學校,學生濫用這類藥物的機會較比例最低的學校高出36%;研究團隊指出,同學之間分享藥物,是沒有確診的學生取得藥物的主要途徑之一。美國國家藥物濫用研究所(NIDA)所長Nora Volkow亦提醒,在沒有醫生處方或指導下使用,可能引致心血管問題、焦慮、思覺失調症狀、甚至誘發癫癇發作。

香港:有藥房無處方出售「聰明藥」

香港亦非例外。《星島申訴王》於2026年6月的報道指,有醫學界人士透露,本港亦有家長逼子女濫用「聰明藥」催谷成績。記者其後放蛇調查,發現有藥房在沒有醫生處方的情況下,出售受管制的精神科藥物,一盒100粒索價1,200元,更有「食後考試會高分些」的推銷說法。

精神科醫生黎大森提醒,這類藥物僅適用於ADHD 患者,濫用可引致多種副作用。換言之,即使這類藥物受法例嚴格規管,家長仍有可能透過不當渠道取得,相關風險不容忽視。

三、孩子專注力差,4個常被忽略的原因

專注力是大腦整合情緒、睡眠、壓力與認知功能後的結果,因此孩子專心不了,成因可能相當多元:

  • ADHD:屬於需由專業醫生評估與診斷的神經發展狀況,香港兒童及青少年盛行率估計約6.4%,即每30人的課室約有1至2位學生。
  • 睡眠不足:建議中學生每晚睡8至10小時,但本港高中學生平均只睡約6.7小時,亦有研究指本港學童睡眠質素欠佳的比率高達48.7%。睡眠被切碎、睡眠效率下降時,醒來後常感昏沉,情緒調節能力亦可能下降。
  • 壓力與情緒:長期壓力可能使HPA軸(壓力荷爾蒙調節系統)過度活化、皮質醇節律紊亂,進而影響情緒與睡眠。
  • 學習與環境因素:學習困難、家庭或校園壓力等,亦可能令孩子難以專心。

因此,比起直接尋求「立即見效」的藥物,更合理的第一步是先釐清原因。當睡眠、壓力與情緒,這些影響專注力的因素出現明顯問題時,我們直覺都會歸因於大腦。但事情似乎沒有這麼簡單。

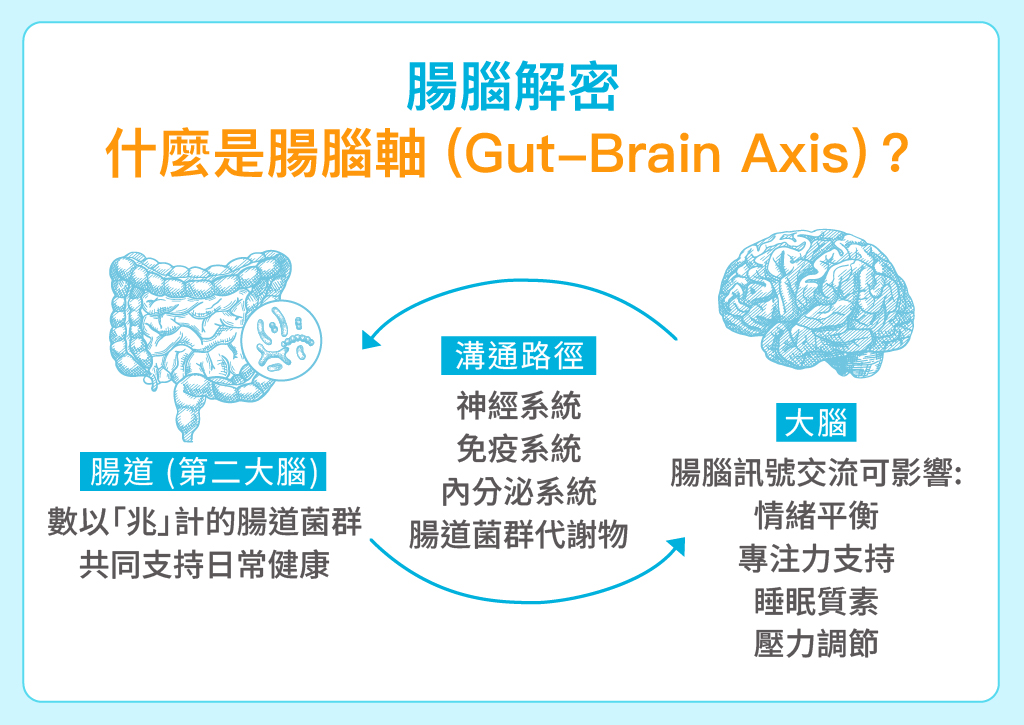
你可能也留意過,不少孩子一到考試前就肚痛、胃口差,正是大腦與腸道互相牽動的日常例子;反過來,腸道的狀態亦可能影響情緒與睡眠。這條連接腸道與大腦的雙向通道,就是近年備受關注的「腸腦軸」(Gut-brain axis)。

<延伸閱讀|壓力大容易生病嗎?解析慢性壓力如何影響免疫與腸道健康>

<延伸閱讀|失眠怎麼辦?睡眠科學、失眠類型與根本改善策略完整指南>

四、腸腦軸是什麼?腸道如何透過4大系統與大腦溝通

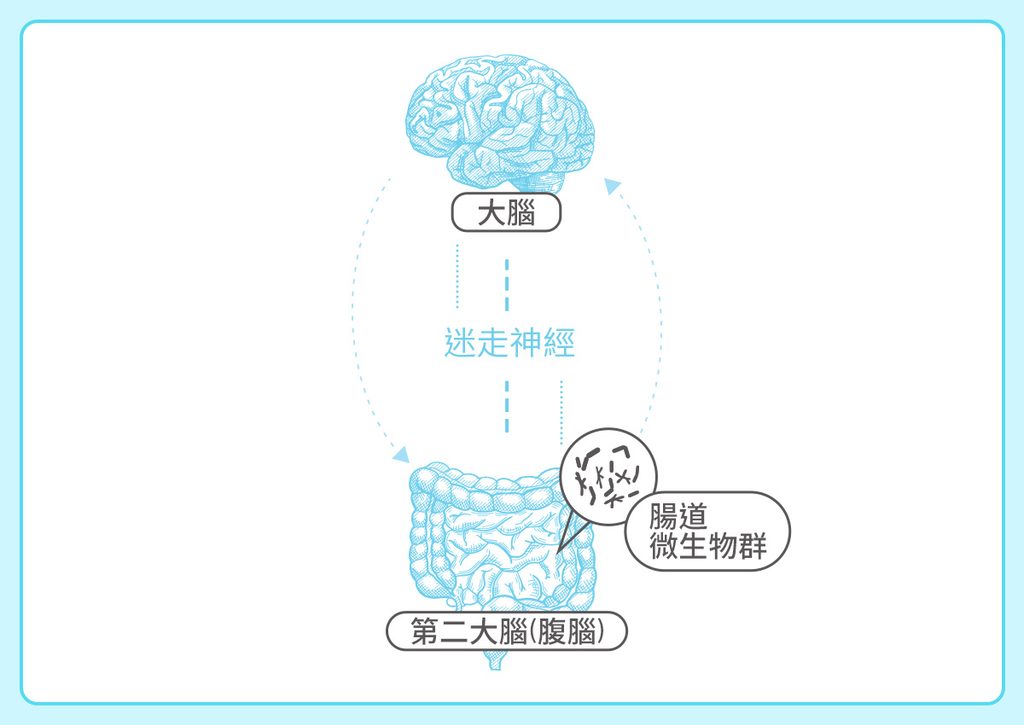
腸腦軸(gut-brain axis)是腸道與大腦之間的雙向溝通網絡,並非單一器官或單一路徑,而是由神經系統、內分泌系統、腸道菌群代謝物以及免疫系統共同構成。人體約九成的血清素在腸道合成,這亦是腸道狀態被認為可能與情緒調節有關的原因之一。四大組成分別如下:

1. 神經系統:腸神經系統與腸腦雙向傳訊

腸道擁有自己的神經網絡,稱為腸神經系統(enteric nervous system),常被形容為「第二大腦」,能自行調控腸道蠕動與分泌。

腸神經系統再透過自律神經與大腦相連,其中迷走神經是主要的傳訊通道之一:腸道的營養狀態、微生物代謝物與腸壁感覺訊號可由此傳到大腦,而大腦的壓力與情緒狀態,亦會反過來影響腸道運作。2025年一項隨機對照試驗發現,抑鬱症患者接受多菌株益生菌介入3個月後,與自律神經功能相關的指標及特定菌群出現同步改變。

2. 內分泌系統:HPA軸與壓力荷爾蒙

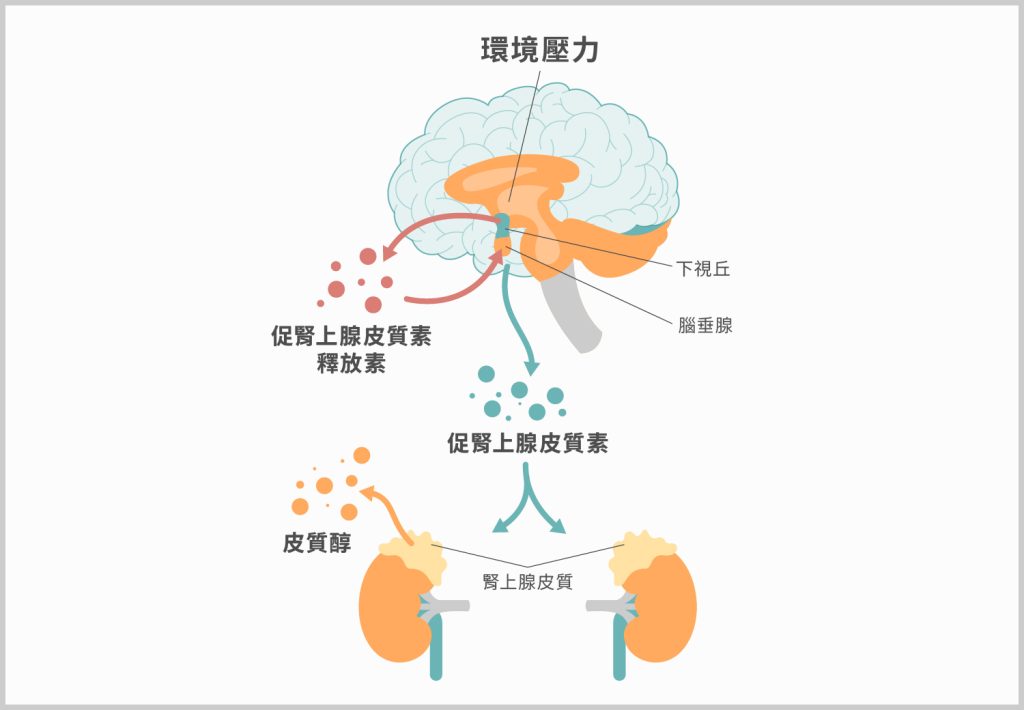
內分泌系統透過荷爾蒙在腸道與大腦之間傳遞訊號,其中最受關注的是下丘腦-腦垂體-腎上腺軸(HPA軸),它是人體重要的壓力調節系統。

當大腦感受到壓力,最終會促使腎上腺釋放皮質醇。短期啟動有助提升能量,但長期或反覆的壓力,可能影響皮質醇節律與壓力回饋調節;而皮質醇亦會作用於腸道上皮與免疫系統,形成腸腦之間的雙向影響。

3. 腸道菌群代謝物:短鏈脂肪酸等化學訊號

腸道菌分解食物時會產生多種代謝物,例如短鏈脂肪酸、色胺酸相關代謝產物及γ-氨基丁酸(GABA)等,被視為腸道菌與人體溝通的化學訊號。

其中研究較多的是短鏈脂肪酸(SCFAs),包括乙酸、丙酸與丁酸,主要由腸道菌發酵膳食纖維而來。2020年一項針對66名健康男性的隨機安慰劑對照試驗發現,補充短鏈脂肪酸後,受試者面對心理社會壓力時的皮質醇反應較低。

4. 免疫系統:腸道屏障與發炎訊號

腸道同時是重要的屏障與免疫組織。飲食、感染與壓力等因素,可能影響腸道通透性與免疫訊號,進而與全身性的發炎反應產生關聯。需要留意的是,上述研究多以成人或特定族群進行,腸腦軸的機制亦多屬「可能的路徑」,並不能直接推論為調整腸道就能馬上改善孩子的專注力。
<延伸閱讀|腸腦軸>

五、精神益生菌是什麼?與一般益生菌的3大分別

「精神益生菌(Psychobiotics)」一詞,是2013年由Dinan、Stanton與Cryan等學者提出,最初指攝取足夠劑量後,可能對精神疾病患者帶來健康效益的活性微生物。隨着腸腦軸研究的發展,2016年的文獻進一步將益生元等能調節腸道菌群的介入方式,納入更廣泛的討論。兩者的分別如下:

比較項目益生菌(Probiotics)精神益生菌(Psychobiotics)
核心概念適量攝取時,能為宿主帶來健康效益的活微生物聚焦於可能透過腸腦軸,影響心理或大腦功能的特定微生物
研究範圍腸道、免疫、代謝等多種健康領域壓力、情緒、焦慮、抑鬱、認知功能等
證據重點依特定健康效益評估需觀察心理、行為或神經生理相關結果

六、精神益生菌PS128有用嗎?從人體研究看壓力、睡眠與專注力

壓力、情緒與睡眠:目前證據較集中的方向

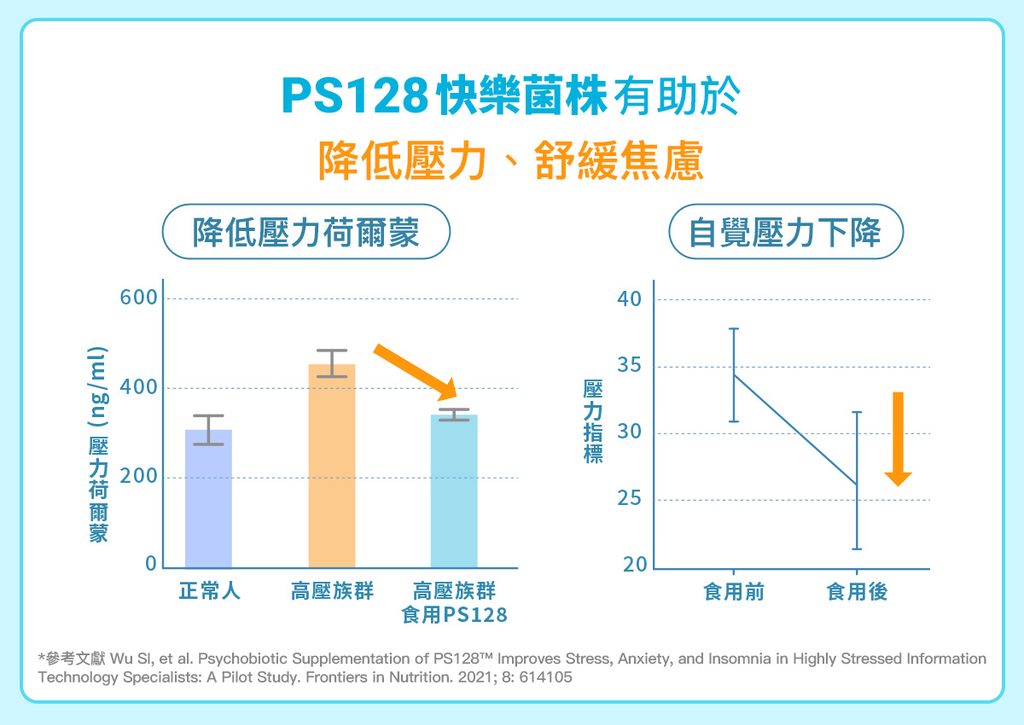
植物乳桿菌PS128的人體研究,多集中在壓力、情緒與睡眠。2021年刊登於《Frontiers in Nutrition》的先導研究,讓高壓的科技從業人員連續8週補充PS128,結果受試者的壓力與焦慮分數下降,正向情緒與自評身心健康有所提升,唾液皮質醇亦出現下降。

另一項2021年的隨機、雙盲、安慰劑對照先導試驗,則以自述失眠者為對象,觀察抑鬱症狀與睡眠質素的變化。這些研究的受試者以成人為主,規模亦屬先導性質,後續仍需要更大規模的試驗驗證。

專注力:初步研究帶來的新方向

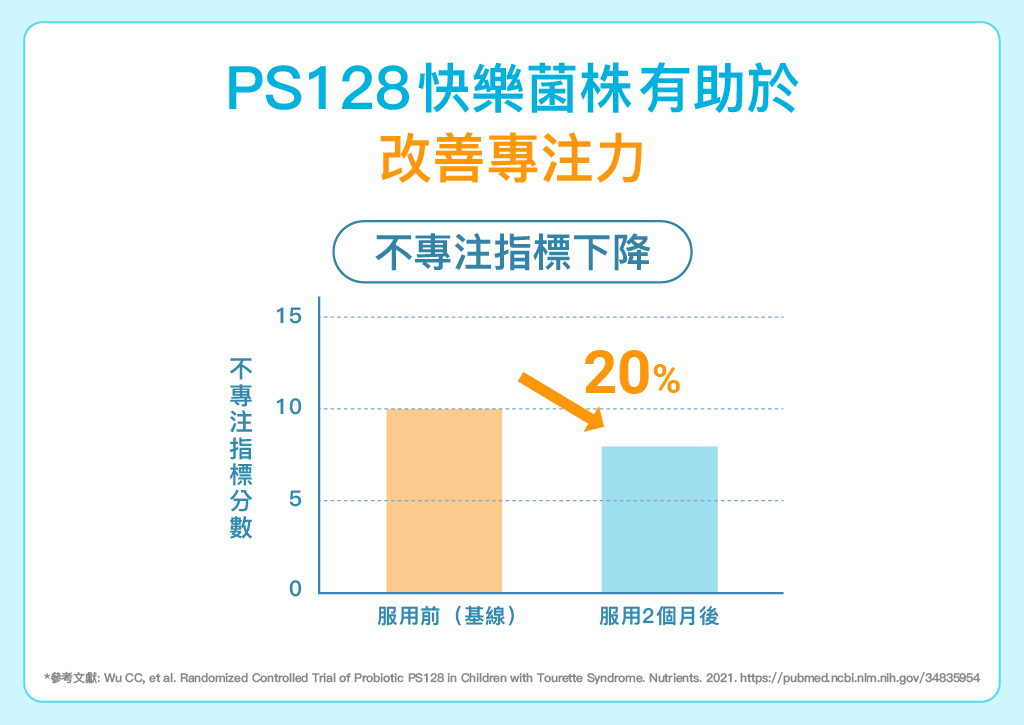
在專注力方面,PS128亦已有初步的人體研究。一項針對5至18歲妥瑞綜合症兒童的隨機、雙盲對照試驗,於基期、1個月與2個月進行評估。

在持續性注意力測驗中,PS128組的部分指標可見改善。研究團隊認為,益生菌對ADHD等共病症狀可能有幫助,值得以更大規模的研究進一步確認。這為「從腸道角度關注專注力」開啟了一個新的研究方向。
精神益生菌、魚油、中藥:坊間常見選擇怎樣比較?

除了精神益生菌,不少家長亦會考慮魚油(Omega-3)、中藥等坊間常見選擇。若以「專注力」為目標,各選項目前的研究基礎如下(魚油證據見,中藥證據見,PS128證據見):

選項坊間常見說法目前研究怎麼說使用前要留意
魚油(Omega-3脂肪酸)補腦、提升專注力2023年考科藍(Cochrane)系統性回顧整合37項試驗、逾2,300名兒童及青少年,補充後對注意力相關症狀未見明顯改善 屬日常營養補充;留意劑量及魚類過敏
中藥寧神、健腦系統性回顧納入12項試驗,目前未有足夠有力的證據顯示能改善專注力等核心症狀,研究質素亦有限 宜由註冊中醫師按個別體質處方,避免自行購買來歷不明產品
精神益生菌PS128調節腸腦軸、紓緩壓力在持續性注意力測驗的部分指標可見改善;另有人體研究觀察到壓力與睡眠指標改善,而兩者都是影響專注的常見因素 選擇具人體研究、標示菌株編號的產品;不取代就醫評估

整體而言,以上選擇都不能取代專業評估。家長可按孩子的需要與各自的研究基礎,把它們視為日常照顧的一部分。

聰明藥與精神益生菌PS128:定位完全不同

兩者的性質、作用方式與研究基礎差異如下(PS128研究對象見上文研究):

比較項目聰明藥(ADHD處方藥)精神益生菌PS128
性質受管制處方藥,須由醫生處方益生菌(活菌補充)
作用方式直接作用於中樞神經的多巴胺、去甲腎上腺素訊號可能透過腸腦軸,間接影響壓力與情緒相關的調節
主要研究對象已確診ADHD的患者高壓成人、自述失眠者,以及妥瑞綜合症兒童
專注力證據對ADHD患者有臨床用途;對未診斷者未獲證實在持續性注意力測驗的部分指標可見改善;且攸關專注力的兩大因素:壓力與睡眠指標皆有改善
使用前提須經醫生診斷與處方屬日常調節選項,不取代就醫評估

七、不靠聰明藥,如何提升孩子專注力?5個關鍵小貼士

  1. 先釐清原因,必要時就醫評估:留意孩子的睡眠、壓力與情緒狀態;若懷疑有ADHD,應經轉介由兒童及青少年精神科醫生評估與診斷。
  2. 固定作息,睡足時數:建議小學生每晚睡9至11小時、中學生8至10小時;即使周末或假期,亦宜維持規律作息,避免通宵使用電子產品打亂睡眠規律。
  3. 增加膳食纖維的種類與發酵食物:2021年史丹福大學針對36位健康成人的隨機試驗發現,進行10週高發酵食物飲食者,菌群多樣性穩定上升,且19項發炎指標下降。這是成人研究,應用在孩子身上仍需按年齡與個別狀況調整。
  4. 重視長期穩定,而非短期補充:一項納入45名健康成人的隨機對照研究顯示,遵從「精神益生菌飲食」4週,遵從程度越高者,自覺壓力下降亦越明顯。
  5. 選擇具人體研究的菌株:挑選標示完整菌種與菌株編號、並有人體試驗的產品。精神益生菌PS128可作為日常支援的選項之一,但不能取代就醫評估與生活習慣調整。

結語:找對原因,比找捷徑更重要

聰明藥並不是為健康孩子設計的捷徑,而是需經醫生診斷與處方的受管制藥物;從韓國的報道亦可以看到,家長對孩子成績的焦慮,是這類藥物流傳的背景之一。孩子專心不了時,更值得先確認睡眠、壓力、情緒或ADHD等原因。腸腦軸與精神益生菌提供了另一個值得關注的研究方向,其中PS128在壓力、情緒與睡眠上已累積人體研究,在專注力方面亦有初步結果,有待更大規模的研究確認。與其尋找單一解方,不如從規律作息、多元飲食與壓力調節等長期調整做起,並在需要時尋求專業協助。

Q&A

Q1:聰明藥在香港合法嗎?

要視乎取得途徑。坊間所稱的「聰明藥」多指利他林、專注達等ADHD藥物,在香港已註冊,但同時受《危險藥物條例》管制,必須經醫生診斷及處方,並由註冊藥房配發,處方上須列明病人身份證號碼及配發數量。

沒有處方而管有這類藥物,即屬刑事罪行;販運危險藥物一經定罪,最高可被罰款500萬元及判處終身監禁。至於阿得拉(Adderall)則未有在香港註冊。換言之,經醫生處方用於確診病人是合法的;透過網店、無處方藥房或朋友分享取得,則可能觸犯法例。

Q2:利他林有咩副作用?

常見副作用包括食慾減少、失眠、頭痛、肚痛及情緒變化,部分人可能出現心跳加快或血壓上升。
在醫生處方和定期覆診下,醫生會按反應調整劑量,副作用一般可以監察和處理;但若未經評估自行服用,風險便難以掌握,濫用更可能引致焦慮、心血管問題,甚至思覺失調症狀。如小朋友正在服用利他林並出現不適,應與主診醫生商討,切勿自行停藥或調整劑量。

Q3:小朋友專注力差,一定是ADHD嗎?

不一定。專注力受多種因素影響,睡眠不足、壓力、情緒困擾、學習困難或家庭及校園環境,都可能令孩子難以專心。
ADHD是一種需由專業醫生評估和診斷的神經發展狀況,香港兒童及青少年的盛行率估計約6.4%,診斷時會考慮症狀是否持續、是否在不同場合(例如學校和家中)都出現,以及是否影響日常生活。家長若有疑慮,可先與學校或家庭醫生商量,按需要轉介至兒童及青少年精神科或兒童體能智力測驗中心評估。

Q4:益生菌可以代替ADHD藥嗎?

不可以。益生菌屬日常補充品,不能取代ADHD藥物或任何醫生處方的治療。
目前精神益生菌PS128的人體研究主要集中在成人的壓力、情緒與睡眠;專注力方面,一項以妥瑞綜合症兒童為對象的研究,在次要指標觀察到部分改善。已確診ADHD的孩子,應按醫生指示用藥及覆診,切勿自行停藥及以補充品替代;如想在治療以外加入益生菌作日常照顧,宜先諮詢醫生意見。

參考資料

  1. SBS Star. Kim Moo-yul’s ‘True Education’ Hits No. 1 on Netflix Global Non-English TV Chart
  2. 星島 東周刊(2026-06-10)《鐵拳教育》真實個案改編 ADHD聰明藥香港名校生也濫用
  3. 香港大學 ASTEP 計劃.給家長的資訊
  4. 香港兒童發展評估中心(2023-03)治療自閉症譜系障礙、專注力不足/過度活躍症藥物資訊.
  5. 東網 on.cc(2014-01-21)學生任買無王管「聰明藥」食壞腦
  6. Yahoo新聞(轉載自蘋果日報,2018-10-15)【教養之道】Smart Drugs 不會令孩子變Smart 濫服聰明藥 易焦慮上癮.
  7. The Korea Times(2025-06-25)ADHD medication prescriptions surge 140% in 5 years, with Gangnam topping national use.
  8. Nutrition Insight(2024-11-06)South Korea cracks down on illegal sale of ‘study drugs’ and misleading supplement advertising.
  9. 港大醫學院藥房.利他林(Ritalin)產品資料
  10. 社區法網.危險藥物相關罪行
  11. 香港體育禁藥資料.販運受管制運動禁藥的法律後果
  12. CBS News(2023-04-19)1 in 4 students misuse ADHD drugs in parts of U.S., study finds.
  13. University of Michigan IHPI(2023-04-18)In some US schools, 1 in 4 students report misusing prescription stimulants.
  14. 星島頭條(2026-06-19)星島申訴王|港版《鐵拳教育》怪獸家長逼食「聰明藥」 放蛇揭藥房違規賣藥:食後考試會高分些
  15. 星島頭條(2024-09-05)專欄 雷雄德|學童睡眠足 讀書更有效率.
  16. Probiotic Lab. 失眠怎麼辦?睡眠科學、失眠類型與根本改善策略完整指南
  17. Probiotic Lab. GABA、色胺酸、精神益生菌有什麼不同?
  18. Mörkl S, et al. Multi-species probiotic supplement enhances vagal nerve function. Gut Microbes. 2025;17:2492377.
  19. Rusch JA, Layden BT, Dugas LR. Signalling cognition: the gut microbiota and hypothalamic-pituitary-adrenal axis. Frontiers in Endocrinology. 2023;14:1130689.
  20. Dalile B, et al. Colon-delivered short-chain fatty acids attenuate the cortisol response to psychosocial stress in healthy men. Neuropsychopharmacology. 2020;45:2257–2266.
  21. Dinan TG, Stanton C, Cryan JF. Psychobiotics: a novel class of psychotropic. Biological Psychiatry. 2013.
  22. Sarkar A, et al. Psychobiotics and the manipulation of bacteria–gut–brain signals. Trends in Neurosciences. 2016.
  23. Wu S-I, et al. Psychobiotic supplementation of PS128 improves stress, anxiety, and insomnia in highly stressed information technology specialists: A pilot study. Frontiers in Nutrition. 2021;8:614105.
  24. Ho Y-T, et al. Effects of Lactobacillus plantarum PS128 on depressive symptoms and sleep quality in self-reported insomniacs: A randomized, double-blind, placebo-controlled pilot trial. Nutrients. 2021;13(8):2820.
  25. Wu CC, et al. Randomized Controlled Trial of Probiotic PS128 in Children with Tourette Syndrome. Nutrients. 2021.
  26. Gillies D, et al. Polyunsaturated fatty acids (PUFA) for attention deficit hyperactivity disorder (ADHD) in children and adolescents. Cochrane Database of Systematic Reviews. 2023;CD007986.
  27. Traditional Oriental Herbal Medicine for Children and Adolescents with ADHD: A Systematic Review. Evidence-Based Complementary and Alternative Medicine. 2012;520198.
  28. Wastyk HC, et al. Gut-microbiota-targeted diets modulate human immune status. Cell. 2021;184:4137–4153.e14.
  29. Berding K, et al. Feed your microbes to deal with stress: a psychobiotic diet impacts microbial stability and perceived stress in a healthy adult population. Molecular Psychiatry. 2023;28:601–610.
孩子上幼兒園後一直生病,是免疫力差?認識抗生素影響與腸道韌性

0

孩子上幼兒園後反覆生病,不一定代表免疫力差。
團體生活增加了接觸病原的機會,而幼兒對不同病原的免疫記憶仍在建立,因此更常出現感染。評估孩子的免疫健康,除了感染次數,也需評估疾病嚴重程度、治療反應,以及生病後的整體恢復狀況。免疫系統除了對抗病原與調節發炎,也包括維持適當的免疫耐受,感染後可能形成針對特定病原的免疫記憶。
腸道黏膜是身體面積極大的防禦屏障,當生病需要抗生素治療時,則應兼顧用藥必要性與腸道菌相恢復。研究顯示,建立完整的「腸道韌性」能提升面對病原時的穩定度、以及病後的恢復能力。
本文說明幼兒園後反覆生病的原因、生命早期菌相發展,以及免疫與腸道的緊密關聯。

一、上幼兒園後彷彿變成「容易生病的體質」?反覆感染不一定是免疫力差

孩子進入幼兒園後頻繁接觸外界,近距離與人互動、共用玩具或接觸被污染的物品後,隨時可能讓病原進入體內。

一項美國研究指出,參與團體照護的孩子,感染腺病毒與人類間質肺炎病毒的風險較高。因此,上幼兒園後反覆生病,不一定是孩子本身的免疫功能不佳,主要還有以下原因:

  • 免疫系統在建構抗體:在家時接觸的病原體有限,剛進入幼兒園時,免疫系統必須透過一次次的接觸與誘發,才能識別各種病毒並產生抗體。
  • 高密度的群體生活:幼兒園孩子多,且衛生習慣(如正確洗手、口水與玩具交替接觸、不會掩口鼻)尚未完全建立,飛沫與接觸傳染的機率極高。
  • 家庭連鎖感染:孩子把病毒帶回家後,常導致全家人輪流感冒,造成家長誤以為病毒特別嚴重。

下表整理孩童常見的感染類型:

感染類型常見疾病或病原例子常見症狀
呼吸道感染一般感冒、流感、RSV 感染、COVID-19常見咳嗽、鼻水或發燒等典型症狀,但須留意不同病原可能造成相似症狀。
腸胃道感染諾羅病毒、輪狀病毒等造成的病毒性腸胃炎嘔吐、腹瀉是常見表現,但不是所有腸胃不適都屬於感染。
腸病毒感染手足口病、疱疹性咽峽炎可經接觸、飛沫或糞口途徑傳播;名稱有「腸」,但通常無腸胃症狀,易與腸胃炎搞混。 5歲以下為重症高危險群,留意重症前兆
其他接觸傳播疾病部分感染性結膜炎、膿痂疹等眼紅腫、灼熱刺痛或皮膚水泡

常見感染雖令人煩惱,卻是免疫系統累積記憶的過程。

孩子的免疫系統如何累積保護力?

免疫系統累積保護力的重要方式之一,是建立對特定病原的「免疫記憶」。

主要仰賴後天性免疫系統,也稱為適應性免疫系統(Adaptive Immunity)。當身體經歷感染或疫苗接腫後,部分免疫細胞會保留辨識特定抗原的能力,讓下一次遇到相同或相近的目標時,能更迅速啟動防禦。

適應性免疫過程主要包含三個階段:

  1. 辨識病原:當病毒或細菌進入身體,先天免疫系統會優先反應,並啟動後天免疫細胞並開始記憶病毒抗原。
  2. 活化與增殖:後天免疫細胞受活化後,產生大量專一性針對該抗原的細胞,透過直接攻擊或製造抗體以對抗病原。
  3. 保留免疫記憶,延續防禦能力:感染控制後,多數參與當次反應的免疫細胞會逐漸減少,但部分記憶型細胞會留下,形成較長期的保護。當相同抗原再次出現,既有抗體與記憶細胞會更快做出針對性反應。

什麼情況要懷疑免疫異常?

孩童的免疫系統異常主要分為兩大類:

  • 免疫力低下(先天或後天免疫缺損)
  • 免疫力過強或錯亂(自體免疫疾病/風濕免疫)

多數孩子會這樣逐步建立保護力,但若出現以下情況,為需要留意的免疫異常:

  • 一年內超過3次細菌性鼻竇炎,或有慢性鼻竇炎
  • 需要長期使用預防性抗生素,才能減少感染次數
  • 一般常見的細菌感染,卻演變成異常嚴重的感染
  • 一年內多次肺炎、反覆深層膿瘍,或需要靜脈抗生素才能控制
  • 1歲後仍持續有鵝口瘡等黴菌感染
  • 體重或身高增加不理想,或家族中有人確診先天性免疫缺損

二、抗生素一定要避免嗎?重點應關注療程後的恢復力

孩子上幼兒園後反覆生病,難免讓家長擔心:「抗生素吃多了,會不會傷身體?」抗生素確實可能改變腸道菌相,但是否需要用藥,應以專業醫師依照感染類型與病情判斷;必要時控制感染,同時關注療程後的恢復狀況。

多數感冒不需要抗生素

感冒、流感、RSV與COVID-19都是由病毒引起,抗生素對病毒無效。感冒恢復期的正常變化長包括黏液變為黃綠色,不代表一定是細菌感染。

不必要的抗生素仍會帶來副作用。美國兒科醫學會指出,最多約每5名用藥兒童就有1名出現副作用,例如皮疹、腹瀉或腹痛等。2022年發表的一項荷蘭隨機試驗,納入147名出生第一週就需要廣效抗生素的新生兒,結果顯示用藥後雙歧桿菌減少、克雷伯氏菌與腸球菌增加,而抗藥基因組成也改變,但多數差異能夠在12個月內趨於正常。

孩子最早的抗生素暴露:產時乙型鏈球菌(GBS)的必要用藥

乙型鏈球菌(Group B Streptococcus, 簡稱 GBS)是一種常見的革蘭氏陽性球菌,通常寄生在人體的胃腸道、泌尿道與生殖系統中。

美國婦產科醫學會(ACOG)2020 年指引指出,帶菌孕婦約有一半會把細菌傳給新生兒。台灣孕婦的產道帶菌率約為18%-20%,母親通常無症狀,風險在於嬰兒若為自然產,經由產道接觸細菌,可能引發早發型(出生7天內發病)或晚發型感染,導致肺炎、腦膜炎、敗血症甚至多重器官衰竭,感染後的致死率約為10–13%。

因此,對符合適應症的孕婦,在產程中給予抗生素,是預防早發型感染的必要措施,但須重視療程後的菌相恢復。

腸道與免疫平衡有什麼關係?

腸道每天接觸食物與大量微生物,除了吸收營養,也是免疫系統辨識外來物質、調節反應的重要場所。腸道免疫不只需要防禦病原體,也要對食物與共生菌建立適當的耐受,避免不必要的發炎。

腸道黏膜的主要三大防禦機制:

  • 物理屏障:由腸道上皮細胞透過「緊密連接」(Tight Junctions)緊密排列,像一道嚴密的圍牆,只允許水分與營養素通過,將細菌、毒素與未消化的食物大分子擋在外面。
  • 化學屏障:透過胃酸、消化液、膽汁以及黏膜分泌的黏液,分解或抑制有害物質與病原體。
  • 免疫屏障:腸道黏膜下聚積大量免疫細胞(如淋巴球、巨噬細胞),能即時辨識並抵抗入侵的病毒與細菌。

另外,腸道內龐大的共生菌群(微生物組),與體內的免疫細胞存在著密不可分的雙向溝通:

  • 訓練免疫耐受性:健全的腸道菌叢能引導免疫細胞精準辨識抗原。若免疫反應過於遲鈍,人體容易遭受感染;若過於敏感,則可能與過敏性疾病有關。例如丹麥研究發現,1歲時腸道菌相仍未成熟的剖腹產兒童,日後氣喘風險較高。
  • 產生抗發炎代謝物:當共生菌分解膳食纖維時,會產生短鏈脂肪酸(SCFAs),能促進免疫細胞的分化,分泌抗發炎因子,並加速生病後的組織修復。

三、生命前1000天如何影響孩子的免疫發育?出生方式、餵養與飲食是重要因素

「生命前 1000 天」(First 1000 Days)指從母親懷孕開始到孩子滿2歲的期間,是世界衛生組織(WHO)、與聯合國兒童基金會(UNICEF)認為會影響孩子一生的黃金關鍵時期,主要影響以下層面:

  • 身體與智能發展:聯合國兒童基金會(UNICEF)指出,這段期間的營養與照護刺激,對終身健康與學習的影響最大。
  • DOHaD理論(Developmental Origins of Health and Disease):理論指出,胎兒在生命前1000天會根據子宮內的母體環境(如營養過剩或不足),預測未來出生後的世界,並調整自身的生理機能來適應。

自然產與剖腹產,會如何影響早期的菌相建立?

分娩方式改變了寶寶與母親菌群的「垂直傳遞(Vertical Transmission)」路徑,顯著影響新生兒早期的腸道與身體菌相建立。

自然產(Vaginal Delivery)的菌相特徵

  • 菌群來源:新生兒在通過母親產道時,會直接接觸到產道菌群、腸道微生物(如雙歧桿菌、乳酸桿菌)。
  • 菌相發展:腸道菌叢以雙歧桿菌(Bifidobacterium,如短雙歧桿菌)、乳酸桿菌(Lactobacillus)、普雷沃氏菌(Prevotella)為主,病原菌相對較少。
  • 免疫影響:產道的好菌群能協助刺激先天的免疫反應、降低腸道pH值以抑制致病菌,也有助於未來免疫系統的穩定發展。

剖腹產(Cesarean Section)的菌相特徵

  • 菌群來源:新生兒未經過母親產道,第一時間接觸的多為手術環境、母親的皮膚表面菌群(如葡萄球菌等)。
  • 菌相發展:初期腸道菌的多樣性較低、有益菌(特別是短雙歧桿菌等比菲德氏菌)明顯不足。
  • 免疫影響:早期菌相建立延遲,可能增加日後過敏、氣喘、呼吸道感染、肥胖或慢性發炎等免疫相關疾病的機率。

然而,微生物的傳遞不僅限於產道,也會在出生後持續發生。因此,剖腹產嬰兒的初期菌相雖然較不完整,但在出生後的「高度可塑期」,可藉由母乳餵養、益生菌補充等方式調整;進入副食品階段後,逐步增加適齡食物的種類與質地,也會讓腸道菌相隨飲食轉變而發展。

四、如何照顧孩子的免疫健康?認識腸道韌性與四大照護重點

上幼兒園後反覆生病、感冒拖很久,值得關注的不只是「免疫力是否夠強」,也包括身體能否妥善調節發炎、逐步恢復日常狀態。

腸道健康是免疫力的基石,決定了身體防禦與恢復系統的強弱。「腸道韌性(Gut Resilience)」是指腸道微生態系統在遭遇外力干擾(如抗生素、腸胃炎、高壓力、感染)後,抵抗病理變化並自主恢復至原健康平衡狀態的能力。

具備良好腸道韌性的兩種核心特性

1. 多樣性(Diversity)

  • 定義:腸道內的菌種越豐富、分布越均勻,整體的生態系就越穩定。
  • 特點:如果菌種單一,腸道就像脆弱的單一作物農場,只要遇到一次外力衝擊(如生病或服藥)較容易失衡;若菌種豐富且比例均衡,就能承受較大的環境波動。

2. 冗餘性(Functional Redundancy)

  • 定義:多個不同的組物種,能夠執行相同或相似的功能。
  • 特點:在健康的腸道生態系中,往往有多種菌可以執行同一項生理功能(例如代謝特定膳食纖維、產生短鏈脂肪酸或神經傳導物質)。當某個菌種因為壓力、感染或抗生素而大量死亡或減少時,具備相似功能的其他菌種能夠補位,確保身體的重要生理機能不中斷。

照顧孩子免疫健康的四大重點:飲食、疫苗、病後照護與益生菌補充

1. 適齡餵養與多樣飲食

進入副食品階段後,依發育能力提供不同種類、適當質地的食物,逐步納入蔬菜、水果、豆類,以及肉、魚、蛋等營養來源。

照護重點是滿足成長需求與建立多樣飲食,不宜只為了「養好菌」,就限制孩子的食物種類。

2. 規律作息與感染預防

日常感染預防包括用肥皂與清水洗手、維持通風、清潔經常接觸的玩具與物品;生病時隔離,有助於降低群體傳播機會。

另外,應依建議接種疫苗,輪狀病毒疫苗可預防嬰幼兒最常見的腹瀉與嘔吐病因。

3. 病後營養與恢復照護

病後照護應依疾病與症狀安排。以病毒性腸胃炎為例,重點是補充流失的水分與電解質;兒童若需要口服電解質補充液,應依醫療人員建議使用,嬰兒通常仍應持續原有的母乳或配方奶餵養。

食慾恢復後,通常就能逐步回到適齡的日常飲食,不必長時間禁食或只吃白粥。若嘔吐、腹瀉持續,或影響進食飲水,應回診評估,而不是只依賴益生菌處理。

4. 依研究證據選擇益生菌

依據科學研究證據選擇益生菌。益生菌的效果具有菌株特異性,「多菌種」「高菌數」不代表實際效益,應看產品是否標示完整菌株編號,以及該菌株在特定情境的研究證據。

照顧孩子的免疫健康,從適齡多樣的飲食、規律作息、感染預防與正確用藥做起。腸道韌性是建立免疫力的重要基礎:除了面對疾病干擾時的穩定,也應重視受到影響後的恢復,與其追求單一的「免疫力提升」,建立免疫韌性,更能回應孩子成長中的需要。

參考資料

  1. DeJonge, P. M., Monto, A. S., Malosh, R. E., Petrie, J. G., Callear, A., Segaloff, H. E., Truscon, R., Johnson, E., Cheng, B., Cranis, M., Tiseo, K., Foote, S., Musci, A., & Martin, E. T. (2023). Comparing the etiology of viral acute respiratory illnesses between children who do and do not attend childcare. The Pediatric Infectious Disease Journal, 42(6), 443–448.
  2. American Academy of Allergy, Asthma & Immunology. (n.d.). Recurrent infections may signal an immunodeficiency.
  3. Shookman, K. (n.d.). Why is my child sick so much? Akron Children’s Hospital.
  4. Centers for Disease Control and Prevention. (n.d.). Preventing and treating common cold [Fact sheet].
  5. Centers for Disease Control and Prevention. (n.d.). Know when antibiotics work: Antibiotic treatment information for families with young children [Brochure].
  6. American Academy of Pediatrics. (n.d.). Antibiotics for children: 10 common questions answered. HealthyChildren.org.
  7. Reyman, M., van Houten, M. A., Watson, R. L., Chu, M. L. J. N., Arp, K., de Waal, W. J., Schiering, I., Plötz, F. B., Willems, R. J. L., van Schaik, W., Sanders, E. A. M., & Bogaert, D. (2022). Effects of early-life antibiotics on the developing infant gut microbiome and resistome: A randomized trial. Nature Communications, 13, Article 893.
  8. American College of Obstetricians and Gynecologists. (2020). Prevention of group B streptococcal early-onset disease in newborns: ACOG Committee Opinion, Number 797. Obstetrics & Gynecology, 135(2), e51–e72.
  9. 衛生福利部(2012年4月23日)。愛的叮嚀與呵護,孕期接受乙型鏈球菌篩檢 讓媽咪寶貝更安心[新聞稿]。
  10. 衛生福利部國民健康署(無日期)。孕婦乙型鏈球菌篩檢補助服務方案。高雄市政府衛生局轉載。
  11. Prescott, S., Dreisbach, C., Baumgartel, K., Koerner, R., Gyamfi, A., Canellas, M., St. Fleur, A., Henderson, W. A., & Trinchieri, G. (2021). Impact of intrapartum antibiotic prophylaxis on offspring microbiota. Frontiers in Pediatrics, 9, Article 754013.
  12. Arboleya, S., Saturio, S., & Gueimonde, M. (2022). Impact of intrapartum antibiotics on the developing microbiota: A review. Microbiome Research Reports, 1(4), Article 22.
  13. Liu, X.-F., Shao, J.-H., Liao, Y.-T., Wang, L.-N., Jia, Y., Dong, P.-J., Liu, Z.-Z., He, D.-D., Li, C., & Zhang, X. (2023). Regulation of short-chain fatty acids in the immune system. Frontiers in Immunology, 14, Article 1186892.
  14. UNICEF Ghana. (2026, February 26). New national policy to ensure every child thrives and reach their full potential [Press release].
  15. Stokholm, J., Thorsen, J., Blaser, M. J., Rasmussen, M. A., Hjelmsø, M., Shah, S., Christensen, E. D., Chawes, B. L., Bønnelykke, K., Brix, S., Mortensen, M. S., Brejnrod, A., Vestergaard, G., Trivedi, U., Sørensen, S. J., & Bisgaard, H. (2020). Delivery mode and gut microbial changes correlate with an increased risk of childhood asthma. Science Translational Medicine, 12(569), Article eaax9929.
  16. Fassarella, M., Blaak, E. E., Penders, J., Nauta, A., Smidt, H., & Zoetendal, E. G. (2021). Gut microbiome stability and resilience: Elucidating the response to perturbations in order to modulate gut health. Gut, 70(3), 595–605.
  17. Tian, L., Wang, X.-W., Wu, A.-K., Fan, Y., Friedman, J., Dahlin, A., Waldor, M. K., Weinstock, G. M., Weiss, S. T., & Liu, Y.-Y. (2020). Deciphering functional redundancy in the human microbiome. Nature Communications, 11, Article 6217.
  18. Szajewska, H., Berni Canani, R., Domellöf, M., Guarino, A., Hojsak, I., Indrio, F., Lo Vecchio, A., Mihatsch, W. A., Mosca, A., Orel, R., Salvatore, S., Shamir, R., van den Akker, C. H. P., van Goudoever, J. B., Vandenplas, Y., & Weizman, Z. (2023). Probiotics for the management of pediatric gastrointestinal disorders: Position paper of the ESPGHAN Special Interest Group on Gut Microbiota and Modifications. Journal of Pediatric Gastroenterology and Nutrition, 76(2), 232–247.
  19. Zhao, Y., Dong, B. R., & Hao, Q. (2022). Probiotics for preventing acute upper respiratory tract infections. Cochrane Database of Systematic Reviews, 2022(8), Article CD006895.
  20. American Academy of Pediatrics. (2021, May 25). Diarrhea in children: What parents need to know. HealthyChildren.org.
  21. American Academy of Pediatrics. (2023, February 6). Treating dehydration with electrolyte solution. HealthyChildren.org.
  22. Hoyle, E., Davies, H., Bourhill, J., Roberts, N., Lee, J. J., & Albury, C. (2023). Effectiveness of hand-hygiene interventions in reducing illness-related absence in educational settings in high income countries: Systematic review and behavioural analysis. Journal of Public Health. Advance online publication.
  23. Pauli, J. M. (2020). 2020 update on obstetrics. OBG Management, 32(1), 15–16, 19–21, 28.

GABA、色胺酸、精神益生菌有什麼不同?作用路徑、起效時間與科學研究比較

0

壓力與睡眠問題已是普遍的健康議題,台灣睡眠醫學學會調查指出,各種廣義的失眠症狀與困擾的盛行率高達25%。另外,健保署在2023年的統計顯示,台灣一年內所開立的安眠藥總數,已超過11億顆,用量居亞洲之冠。

GABA、色胺酸與精神益生菌常被歸為「放鬆、助眠」的保健品補充選項,但三者的作用路徑卻各不相同。最大的差異在於介入身體調節的方式:GABA與直接抑制性神經傳訊有關;色胺酸提供合成血清素的原料;精神益生菌則著重於腸道菌與大腦之間的相互影響。

本文解析GABA 在口服後會經歷的四道環節、色胺酸代謝的步驟與路徑、以及精神益生菌如何透過腸腦軸,調節壓力與睡眠。

一、壓力大、睡不好,GABA、色胺酸與益生菌如何參與調節?

以下分別列出GABA、色胺酸與益生菌調節壓力與睡眠的不同方式:

  • GABA(γ-胺基丁酸):
    • 作用機制:抑制性神經傳導物質,能降低神經細胞的興奮度。
    • 調節方式:安定腦波、緩解緊張焦慮的情緒,幫助緊繃的思緒慢下來,提供「放鬆而非強迫入睡」的身體環境。
  • 色胺酸(Tryptophan):
    • 作用機制:人體無法自行合成的必需胺基酸,為血清素(Serotonin)與褪黑激素(Melatonin)的前驅物。
    • 調節方式:在白天可轉化為血清素以穩定情緒;夜間進一步合成褪黑激素,幫助啟動入睡機制並調整生理時鐘。
  • 精神益生菌(Psychobiotics):
    • 作用機制:特定菌株能透過腸道與大腦的雙向溝通管道(腸腦軸)發揮作用。
    • 調節方式:調整腸道菌相、降低身體發炎反應。能間接影響色胺酸的代謝或自行產生GABA,從根源緩解因壓力造成的精神緊繃與睡眠障礙。

整體而言,GABA偏向短時間內的放鬆反應;色胺酸取決於原料能否順利轉換,若處於長期壓力,會促使色胺酸更多轉往犬尿胺酸代謝途徑,可用於合成血清素的比例隨之減少;而精神益生菌則是從改變腸道環境、透過菌腦腸軸長期影響中樞神經與身心狀態。

二、口服GABA能進入大腦嗎?認識吸收與作用路徑

GABA是中樞神經系統主要的抑制性神經傳導物質,負責讓過度興奮的神經訊號暫停;人體可在麩胺酸與維生素B6參與下自行合成。部分食物中也含有 GABA,例如糙米、黃豆、紅豆、茶、番茄、發芽米與部分發酵食品,其中發芽與發酵製程能明顯提高GABA含量。

口服 GABA 後,並不等於能進入大腦

口服後的GABA作用,大致會受以下四道環節影響:

1. 小腸吸收

GABA是小型、高極性的分子,不易靠被動擴散穿過腸壁,主要依賴小腸的胺基酸轉運蛋白吸收,吸收量也可能受同餐食物與腸道酸鹼值影響。

2. 肝臟首度代謝

吸收後的GABA先經門靜脈送往肝臟,相當比例會在進入全身循環前被肝細胞攝取及代謝。血中濃度約在0.5–1小時達高峰,但半衰期較短。

3. 不易穿過血腦屏障

儘管口服後,「血漿」中的 GABA濃度上升,但能跨越血腦屏障產生助眠效果的比例卻相當有限。

4. 間接作用與個體差異

目前較受關注的假說是GABA作用於腸道神經系統或迷走神經,再透過腸腦軸間接影響大腦;另有部分研究指出,GABA可能會促進血管內皮細胞釋放一氧化氮,進而改變血腦屏障的通透性,讓極少量的 GABA 有機會間接影響中樞神經。

因此,較貼近現有證據的理解為:單一成分的GABA對於深層睡眠的維持、減少夜醒頻率的幫助相對較有限。

三、色胺酸如何幫助放鬆?對睡眠有什麼效果?

色胺酸本身不是放鬆物質,而是合成血清素的唯一前驅物。血清素參與情緒調節、睡眠與食慾,並可在腦中松果體進一步轉為調節入睡與生理時鐘的褪黑激素。

人體無法自行合成色胺酸,只能從牛奶、鮪魚、火雞肉、燕麥、起司、堅果與種子等富含蛋白質的食物獲得。從吃進色胺酸到腦中出現血清素,中間的轉換流程包括以下步驟:

1. 小腸吸收

色胺酸主要在小腸吸收,同餐攝取的其他中性胺基酸會限制它的吸收與可利用量。

2. 體內分流

吸收後的色胺酸約9成進入犬尿胺酸代謝途徑,只有約1–2%會用於合成血清素,另有約4–6%由腸道細菌分解為吲哚類物質。長期壓力與發炎反應,會把色胺酸過度推向犬尿胺酸途徑,產生具有神經毒性的代謝物。

3. 穿越血腦屏障

血液中的色胺酸與白蛋白結合後,須與其他大型中性胺基酸競爭同一條通道進入大腦。因此,腦部能取得多少色胺酸,不只取決於攝取量,也取決於它與競爭胺基酸的比例。

4. 腦內合成血清素與褪黑激素

進入腦部的色胺酸先轉為5-HTP,再轉為血清素;夜間在松果體則可再轉為褪黑激素。然而,在此中樞神經系統中製造的血清素只佔約10%,人體其餘約90%的血清素則是在腸道合成。

在人體證據上,一篇2022年的系統性回顧與統合分析顯示,補充色胺酸可縮短入睡後的清醒時間(Wake After Sleep Onset,簡稱 WASO);每日攝取1公克以上的組別,入睡後清醒時間約29分鐘,未達1公克的組別約57分鐘,但對於其他睡眠指標則沒有顯著影響。

四、什麼是精神益生菌?從「快速放鬆」到「恢復平衡」

2013年,學者Dinan、Stanton與Cryan在《Biological Psychiatry》首次提出「精神益生菌(Psychobiotics)」一詞,最初主要指稱:「當攝取足夠劑量時,可能對精神疾病患者帶來健康效益的活性微生物」。

隨著菌腸腦軸的研究發展,2016年Sarkar等學者在《Trends in Neurosciences》進一步將Psychobiotics放在更廣泛的菌腸腦軸框架下討論,不再侷限於活菌本身與特定精神疾病,也納入了益生元、及其他能調節腸道菌相組成的介入,是否能影響情緒、認知與壓力反應等大腦相關功能。

因此,「精神益生菌」並不是泛指所有對腸道有益的益生菌,而是聚焦於具有菌腸腦軸相關研究證據的微生物介入。目前學術文獻對Psychobiotics的使用範圍仍未完全一致,部分研究也會將益生質(prebiotics)等能調節腸道菌群的介入方式納入廣義討論。

精神益生菌和一般益生菌的差異比較

兩者最大的差異不在於「菌的種類」,而在於研究目的與證據方向。益生菌的科學定義較純粹為「對宿主帶來健康效益」;精神益生菌則進一步聚焦於心理健康、與菌腸腦軸相關研究。因此,某個菌種若具有維持腸道健康的功能,並不代表它自然具有壓力、情緒或認知方面的功效。

下表呈現兩者主要差異比較:

比較項目益生菌Probiotics精神益生菌Psychobiotics
核心概念適量攝取時能為宿主帶來健康效益的活微生物聚焦於可能透過菌腸腦軸影響心理或大腦功能的特定微生物
研究範圍腸道、免疫、代謝等多種健康領域壓力、情緒、焦慮、憂鬱、認知功能等
證據重點依特定健康效益評估需觀察心理、行為或神經生理相關結果

精神益生菌可能影響大腦的作用機制

精神益生菌的研究機制與前述菌腸腦軸密切相關。目前研究主要從以下幾個方向探索:

  • 調節壓力反應:可能與HPA軸、及皮質醇等壓力相關生理指標有關。
  • 影響免疫與發炎訊號:腸道微生物可能參與細胞激素及神經免疫調節。
  • 影響微生物代謝物:包括短鏈脂肪酸與色胺酸代謝途徑。
  • 參與神經訊號傳遞:部分研究關注迷走神經、神經活性物質及相關代謝路徑。

精神益生菌的研究證據,應以「特定菌株」為基礎

目前益生菌研究的重要原則之一,是效果具有菌株特異性(strain specificity)。系統性回顧顯示,即使兩株菌屬於相同菌種,也可能因遺傳特性與功能不同,而產生不同的生理作用。

因此,實驗結果應確認原始研究所使用的完整菌株名稱、劑量、介入時間與研究族群進行解讀,而不宜將單一菌株的研究結果直接延伸至同菌種的所有菌株。

重建完整腸道菌叢:讓身體恢復自然調節的能力

腸道菌叢會隨著每天吃進的食物而改變。膳食纖維是腸道菌的主要燃料,菌群發酵纖維後會產生丁酸、乙酸、丙酸等短鏈脂肪酸,這些分子能進入血液循環並影響全身代謝與腦部健康,以下列出短鏈脂肪酸的種類與功能:

  • 乙酸(Acetate):血液中濃度最高,能參與脂肪合成與血糖調節。
  • 丙酸(Propionate):主要被肝臟利用,協助調控膽固醇與血糖代謝。
  • 丁酸(Butyrate):作為腸道細胞的主要能量來源,並能保護腸壁屏障

其中,丁酸還能抑制IDO酵素,減少色胺酸被導向犬尿胺酸途徑。換句話說,養好腸道菌,就是在維護GABA、血清素與短鏈脂肪酸的正常生產。

史丹佛大學於 2021 年發表的隨機試驗,讓 36 位健康成人分別執行高纖飲食或高發酵食物飲食 10 週,兩種飲食呈現不同的效果:

  • 高纖飲食組:菌叢中負責分解多醣的酵素基因增加,代表腸道菌處理纖維的能力提升;菌相多樣性維持穩定,免疫反應的變化則與每個人起始時的菌相多樣性有關。
  • 高發酵食物飲食組:菌相多樣性在10週內穩定上升,同時有19項發炎指標下降,其中包括與慢性發炎密切相關的介白素-6。

以下列出重建健康的腸道菌叢的關鍵:

1. 增加膳食纖維的種類

研究中的飲食以洋蔥、韭蔥、高麗菜、蘋果、香蕉、燕麥等富含益生元纖維的食物為主,再搭配穀類與豆類。不同食物提供不同類型的纖維,種類越多,能被餵養的菌群也就愈廣。

2. 每天盡可能攝取發酵食物

發酵食物是利用有益菌分解食材中的醣類與蛋白質,轉化為更小分子與營養的天然食品。在史丹佛的試驗中,發酵食物是提升菌相多樣性效果最明顯的飲食方式。常見的優格、泡菜、味噌、納豆等都屬於發酵食物。 

3. 固定作息,穩定生理時鐘

固定作息與穩定生理時鐘能讓腸道菌同步維持晝夜節律,確保代謝、免疫與修復功能正常運作。人體內有高達15%-30%的菌群數量與功能,會隨著日夜週期產生規律變化。

食藥署建議:固定就寢與起床時間、午睡不超過半小時、規律運動但避免睡前劇烈運動,並減少咖啡因與睡前使用手機。褪黑激素本身就是調節生理時鐘的主要荷爾蒙,規律作息與它的分泌節奏相輔相成。

4. 補充具科學研究的精神益生菌菌株

精神益生菌的效果因菌株而異,只有特定菌株編號才具備調控腸腦軸、改善情緒與睡眠的臨床證據。挑選產品時,通常較適合選擇標示完整菌種與菌株編號、且該菌株具有人體試驗;國際專家也建議以全基因體定序確認菌株身分。以下為幾款在國際期刊與臨床實驗中,具代表性且擁有科學研究實證的精神益生菌(Psychobiotics)菌株:

  • 調整多巴胺與血清素:植物乳桿菌PS128
    • 科學背景:腸腦軸應用的專利菌株
    • 實證功效:
      • 調節大腦神經傳導物質:實驗證實其能透過腸腦軸,提升大腦前額葉皮質的多巴胺與血清素濃度,並降低壓力荷爾蒙(皮質酮)。
      • 改善高壓族群失眠:在針對高科技從業人員的8週臨床研究中,受試者回報焦慮、壓力顯著下降,且睡眠障礙得到明顯減輕。
  • 鎖定深層睡眠與抗發炎:發酵乳桿菌PS150
    • 科學背景:腸腦軸應用的專利菌株
    • 實證功效:
      • 延長深層睡眠:研究發現PS150能顯著縮短入睡潛伏期(更快入睡),並增加夜間深層睡眠(Deep Sleep)的持續時間抑制神經發炎:它能有效抑制腸道與全身性慢性發炎,減少HPA軸(下視丘-腦下垂體-腎上腺軸)的過度活化,進而穩定夜間的睡眠節律
  • 經典減壓舒眠複方:瑞士乳桿菌R0052+長雙歧桿菌R0175
    • 科學背景:國際上最早進行人體雙盲臨床試驗的精神益生菌複合配方之一
    • 實證功效:
      • 降低心理壓力指標:一項為期30天的臨床實驗指出,健康受試者在每日補充此核心配方後,血液中的皮質醇明顯下降,並有效改善由壓力引起的腸胃不適(如神經性胃痛、腸躁症)。
  • 舒緩焦慮與副交感神經調控:鼠李糖乳桿菌GG (LGG) 與HN019
    • 科學背景:常被用於腸道或免疫調節,但其在特定實驗中也展現了優異的腸腦軸互動能力
    • 實證功效:
      • 迷走神經傳導:研究指出特定的鼠李糖乳桿菌能刺激腸道迷走神經,促進大腦內GABA的釋放,幫助大腦開關切換至「放鬆、準備入睡」的副交感神經狀態。

參考資料

  1. Almutairi, S., Sivadas, A., & Kwakowsky, A. The effect of oral GABA on the nervous system: Potential for therapeutic intervention. Nutraceuticals, 2024; 4(2): 241–259.
  2. Baião, R., Capitão, L. P., Higgins, C., Browning, M., Harmer, C. J., & Burnet, P. W. J. (2023). Multispecies probiotic administration reduces emotional salience and improves mood in subjects with moderate depression: A randomised, double-blind, placebo-controlled study. Psychological Medicine, 53(8), 3437–3447.
  3. Berding, K., Bastiaanssen, T. F. S., Moloney, G. M., Boscaini, S., Strain, C. R., Anesi, A., Long-Smith, C., Mattivi, F., Stanton, C., Clarke, G., Dinan, T. G., & Cryan, J. F. (2023). Feed your microbes to deal with stress: A psychobiotic diet impacts microbial stability and perceived stress in a healthy adult population. Molecular Psychiatry, 28(2), 601–610.
  4. Haq, S., Grondin, J. A., & Khan, W. I. (2021). Tryptophan-derived serotonin-kynurenine balance in immune activation and intestinal inflammation. The FASEB Journal, 35(10), Article e21888.
  5. L-tryptophan. (n.d.). In Davis’s drug guide. Unbound Medicine. Retrieved September 30, 2026, from https://www.unboundmedicine.com/harrietlane/view/Davis-Drug-Guide/110127/6/L_tryptophan
  6. Lu, W.-Y. (2026). Supplementation of γ-aminobutyric acid as a functional nutrient. Nutrients, 18(14), Article 2389.
  7. Merenstein, D., Pot, B., Leyer, G., Ouwehand, A. C., Preidis, G. A., Elkins, C. A., Hill, C., Lewis, Z. T., Shane, A. L., Zmora, N., Petrova, M. I., Collado, M. C., Morelli, L., Montoya, G. A., Szajewska, H., Tancredi, D. J., & Sanders, M. E. (2023). Emerging issues in probiotic safety: 2023 perspectives. Gut Microbes, 15(1), Article 2185034.
  8. Nikolova, V. L., Cleare, A. J., Young, A. H., & Stone, J. M. (2023). Acceptability, tolerability, and estimates of putative treatment effects of probiotics as adjunctive treatment in patients with depression: A randomized clinical trial. JAMA Psychiatry, 80(8), 842–847.
  9. Oketch-Rabah, H. A., Madden, E. F., Roe, A. L., & Betz, J. M. (2021). United States Pharmacopeia (USP) safety review of gamma-aminobutyric acid (GABA). Nutrients, 13(8), Article 2742.
  10. O’Riordan, K. J., Collins, M. K., Moloney, G. M., Knox, E. G., Aburto, M. R., Fülling, C., Morley, S. J., Clarke, G., Schellekens, H., & Cryan, J. F. (2022). Short chain fatty acids: Microbial metabolites for gut-brain axis signalling. Molecular and Cellular Endocrinology, 546, Article 111572.
  11. Roth, W., Zadeh, K., Vekariya, R., Ge, Y., & Mohamadzadeh, M. (2021). Tryptophan metabolism and gut-brain homeostasis. International Journal of Molecular Sciences, 22(6), Article 2973.
  12. Sutanto, C. N., Loh, W. W., & Kim, J. E. (2022). The impact of tryptophan supplementation on sleep quality: A systematic review, meta-analysis, and meta-regression. Nutrition Reviews, 80(2), 306–316.
  13. Taiwan Food and Drug Administration. (2020, August 19). Ye ye hao mian [Sleep well every night]. Ministry of Health and Welfare. https://www.mohw.gov.tw/cp-4628-55275-1.html
  14. University College Cork. (2022, October 27). New study shows stress can be reduced by a psychobiotic diet [News release]. https://www.ucc.ie/en/news/2022/new-study-shows-stress-can-be-reduced-by-a-psychobiotic-diet-.html
  15. Wastyk, H. C., Fragiadakis, G. K., Perelman, D., Dahan, D., Merrill, B. D., Yu, F. B., Topf, M., Gonzalez, C. G., Van Treuren, W., Han, S., Robinson, J. L., Elias, J. E., Sonnenburg, E. D., Gardner, C. D., & Sonnenburg, J. L. (2021). Gut-microbiota-targeted diets modulate human immune status. Cell, 184(16), 4137–4153.e14.
  16. World Health Organization. (2022, March 2). COVID-19 pandemic triggers 25% increase in prevalence of anxiety and depression worldwide [News release]. Pan American Health Organization. https://www.paho.org/en/news/2-3-2022-covid-19-pandemic-triggers-25-increase-prevalence-anxiety-and-depression-worldwide
  17. Messaoudi M, Lalonde R, et al. Assessment of psychotropic-like properties of a probiotic formulation (Lactobacillus helveticus R0052 and Bifidobacterium longum R0175) in rats and human subjects. Br J Nutr. 2011 Mar;105(5):755-64. 
  18. Lee MC, Chen CY, Chen CY, Huang CC. Heat-Treated Limosilactobacillus fermentum PS150 Improves Sleep Quality with Severity-Dependent Benefits: A Randomized, Placebo-Controlled Trial. Nutrients. 2025 Dec 19;18(1):14.
  19. Ho YT, Tsai YC, Kuo TBJ, Yang CCH. Effects of Lactobacillus plantarum PS128 on Depressive Symptoms and Sleep Quality in Self-Reported Insomniacs: A Randomized, Double-Blind, Placebo-Controlled Pilot Trial. Nutrients. 2021 Aug 17;13(8):2820. 
  20. Lin, A., Shih, CT., Chu, HF. et al. Lactobacillus fermentum PS150 promotes non-rapid eye movement sleep in the first night effect of mice. Sci Rep 2021; 11: 16313
  21. Messaoudi, M., Lalonde, R., et al. Assessment of psychotropic-like properties of a probiotic formulation (Lactobacillus helveticus R0052 and Bifidobacterium longum R0175) in rats and human subjects. British Journal of Nutrition, 2011; 105(5), 755–764.
  22. Bravo, J. A., Forsythe, P., et al. Ingestion of Lactobacillus strain regulates emotional behavior and central GABA receptor expression in a mouse via the vagus nerve. Proceedings of the National Academy of Sciences, 2011; 108(38): 16050–16055.

壓力大容易生病嗎?解析慢性壓力如何影響免疫與腸道健康

0

壓力大是否較容易生病?壓力確實會影響免疫,因而提高感染風險。

短期、偶發的壓力是身體正常的適應反應。研究指出,急性壓力能暫時強化免疫、有助於抵禦感染,慢性壓力則會讓免疫功能失調或受到抑制,也可能與感染更頻繁、發炎時間拉長有關。

壓力反應的核心是HPA軸(下視丘-腦下垂體-腎上腺軸)與皮質醇(壓力荷爾蒙)。長期壓力讓HPA軸的回饋調節受損,並出現糖皮質素受體阻抗與皮質醇分泌紊亂,使身體偏向促發炎狀態。壓力也可能造成腸道屏障薄弱與腸道菌相改變,影響身體對疾病或病原菌的抵抗能力。

本文將從壓力反應與免疫變化談起,接著說明腸道菌相與代謝功能,最後整理五個生活調整方向。

一、壓力怎麼影響身體?從HPA軸與皮質醇認識壓力反應

壓力會牽動全身,是因為大腦把「感受到威脅」轉換成神經與荷爾蒙訊號。研究將連結壓力與免疫的主要路徑歸納為兩條:

  • HPA軸:負責調控皮質醇,影響範圍涵蓋代謝、血壓與發炎反應。
  • 交感神經系統:負責啟動「戰或逃反應」(Fight-or-Flight),釋放腎上腺素與去甲腎上腺素。快速調節心跳、血壓與呼吸速率,並在短期內重塑免疫細胞的分佈,但若長期處於活化狀態,會導致慢性發炎並抑制免疫細胞的防禦功能。

HPA 軸如何把壓力訊號傳遍全身?

以下列出HPA軸從啟動到回穩的步驟:

步驟 1:下視丘接收壓力訊號

身體察覺壓力時,下視丘會釋放促腎上腺皮質素釋放激素(CRH)。

步驟 2:腦下垂體前葉分泌ACTH

CRH刺激腦下垂體前葉產生促腎上腺皮質素(ACTH)。

步驟 3:腎上腺皮質釋放皮質醇

ACTH 促使腎上腺皮質合成並釋放皮質醇。

步驟 4:皮質醇回頭抑制上游,形成負回饋

具活性的游離皮質醇會與糖皮質素受體結合,對下視丘與腦下垂體產生回饋抑制,讓壓力反應在事件過後逐漸回穩。

皮質醇是不是越低越好?

皮質醇是維持正常生理功能所需的荷爾蒙,並不是越低越好,而HPA軸也並非只在壓力時運作。皮質醇的分泌也依循日夜節律,由視交叉上核的節律中樞調控,亦參與能量代謝與免疫調節。

皮質醇在身體裡負責哪些工作?

血液中約5%的皮質醇以游離形式存在,其餘90–95%與蛋白質結合,只有游離型的皮質醇具生物活性。它的主要作用可分為三類:

  • 能量與循環:促進糖質新生並提高胰島素阻抗,確保壓力期間的能量供應;也會調節血壓與血管張力、增加心輸出量。
  • 免疫反應:在正常狀態與短期壓力下,皮質醇會抑制促發炎細胞激素、提升抗發炎細胞激素,避免發炎反應過度。
  • 日夜節律:皮質醇通常在起床後一小時內上升,之後隨著白天逐漸下降。

壓力長期不退時,HPA軸會出現哪些變化?

短期壓力結束後,負回饋會讓皮質醇回到基準;慢性壓力會使HPA軸回饋受損,並出現糖皮質素受體阻抗與皮質醇失調,讓身體形成促發炎狀態。

所謂糖皮質素受體阻抗,是指免疫細胞對糖皮質素的敏感度下降,即使皮質醇分泌,也無法發揮預期的抗發炎效果。另有研究顯示,長期處於慢性壓力下,皮質醇也可能失去原本的日夜節律。

學界常用「異位負荷」(allostatic load)描述壓力的累積效應,也涵蓋壓力帶來的健康損害狀況,例如睡眠品質降低、日夜節律紊亂、缺乏運動、吸菸飲酒、不健康的飲食、以及連帶受影響的腸道菌相。

二、壓力大容易生病嗎?壓力是如何影響身體免疫力?

心理感受轉化為免疫變化的核心機制,在醫學上稱為「心理神經免疫學」(Psycho-neuroimmunology, PNI),是專門研究「大腦認知(心理)」、「神經與內分泌系統」以及「免疫系統」三者之間的雙向互動機制。

過去認為大腦只會單向命令身體,但PNI證實了雙向機制:

  • 心理影響免疫(Top-Down):長期處於焦慮、抑鬱或高壓下,大腦活化HPA軸與交感神經系統。持續分泌的皮質醇與兒茶酚胺會與免疫細胞上的受體結合,抑制免疫細胞活性,並打亂細胞激素(Cytokines)的平衡,導致免疫力下降、慢性發炎或傷口癒合變慢。
  • 免疫影響心理(Bottom-Up):當身體受到感染或有慢性發炎時,免疫細胞釋放的發炎性細胞激素(如 IL-1, IL-6, TNF-α)能通過血腦屏障或透過迷走神經傳回大腦。這會引發所謂的「生病行為」(Sickness Behavior),表現出疲憊、嗜睡、食慾不振、社交退縮、甚至類似憂鬱症的情緒反應。

短期與長期壓力,差別在哪裡?

短期壓力會使免疫細胞在血液與組織之間重新分布,暫時調整身體的防禦配置;當壓力長期持續,則可能影響免疫細胞的反應能力,並增加持續性的發炎。

比較面向短期壓力慢性壓力
持續方式短暫出現的壓力事件壓力長期存在或反覆發生。
免疫細胞的變化暫時調動免疫細胞,改變其分布與活動,屬於一種生存保護機制部分免疫細胞的功能與反應受到干擾,或被過度抑制
對發炎的影響出現短暫的發炎訊號變化免疫細胞對皮質醇產生「耐受性」,與持續性的低度發炎有關。
理解重點屬於身體應付挑戰的反應,並非所有免疫功能都提高防禦功能減弱與發炎增加可能同時存在,並加速免疫老化。大幅增加自體免疫疾病、心血管疾病與憂鬱症的風險

這也解釋「發炎較多」並不代表「免疫力較強」。慢性壓力下,身體可能持續釋放發炎訊號,但部分免疫功能反而受到影響。

壓力大,真的比較容易生病嗎?

人體研究支持:心理壓力大的人,不僅感染病毒的機率顯著提高,感染後出現相對嚴重症狀的比例,也是壓力小的人的2倍以上。

一項2012年發表於《PNAS》的人體研究,評估276名健康成人的壓力事件與免疫反應,發現長期壓力與免疫細胞對皮質醇的敏感性下降有關,會導致免疫細胞的反應變弱,無法有效抑制發炎反應。研究也發現,敏感性下降也與感染後鼻腔中較多的促發炎細胞激素有關。

因此,壓力影響感冒的方式,除了防禦功能的變化,也涉及感染後的發炎反應能否受到妥善調節。

「免疫負債」與「慢性壓力」造成的免疫失衡有什麼不同?

「免疫負債」(Immunity debt)是指因為長期處於嚴格防疫,導致人體減少接觸常見病原體,使免疫系統缺乏刺激,主要用來解釋:當某些病原的傳播減少一段時間後,重新接觸時,可能出現較大的感染波峰。 「免疫負債」與「慢性壓力」雖都會導致人體免疫力失調,但兩者的根本成因、對免疫系統的影響機制,以及好發的疾病類型截然不同。下表說明兩者差異:

比較面向慢性壓力相關的免疫變化免疫負債或免疫缺口
主要觀察對象個人的神經、荷爾蒙與免疫反應。群體對特定病原的免疫保護分布。
核心變化免疫細胞功能及發炎調節受到影響。易感者累積,部分既有的免疫保護隨時間下降。
主要解釋的現象壓力與發病風險、發炎反應的關聯。病原重新傳播後的感染波峰與流行時間變化。

三、慢性壓力也是腸道的擾動來源?認識菌相與代謝功能的變化

壓力造成的生理變化,常先在腸胃道表現出來。

慢性壓力也會成為腸道的擾動來源,不只影響菌群組成,也包括腸道環境與微生物相關的代謝活動。研究指出,創傷性或慢性壓力,與整段腸道的多種適應不良變化有關,急性壓力的影響則較少。這些腸道變化可能提高腸胃疾病與感染的機會,也可能干擾腸道與大腦之間的溝通。

大腦與腸道如何互相傳遞壓力訊號?

腸道與大腦會透過神經、內分泌及免疫訊號雙向溝通,稱為「菌腸腦軸」。 壓力反應可能影響腸道蠕動、分泌、屏障與局部免疫活動,進而改變微生物所處的環境。臨床分類也反映了此觀點。英國胃腸病學會2021年指引指出:「腸躁症」已從功能性腸胃疾病重新歸類為「腸腦互動障礙」。

慢性壓力影響腸道的主要層面

影響層面研究觀察
腸道屏障與通透性壓力可能經肥大細胞相關機制,提高腸道通透性
菌相組成壓力水平較高者,部分菌屬的豐富度出現改變
微生物代謝功能所有與壓力呈負相關的菌群中,包含了可產生丁酸的菌屬
腸道神經與內臟敏感度腸神經系統迴路與內臟敏感度的變化,是壓力研究的重點之一

較具代表性的為新冠疫情期間的一線醫護人員研究。結果顯示高壓事件引發了明顯的憂鬱、焦慮與壓力,並打亂腸道菌相,且失調情況至少持續半年。

其中,與心理健康相關的菌以具抗發炎作用的 Faecalibacterium (糞桿菌屬)與 Eubacterium eligens(伊氏真桿菌群)為主。研究也發現,剛結束一線工作時的特定菌種豐富度,可以預測後續創傷後壓力症狀是否再次出現。

腸道菌的代謝功能為什麼值得關注?

腸道菌對身體的影響,很大一部分來自它們分解食物後產生的代謝物。其中和壓力關係最密切的有兩條路徑:

  • 短鏈脂肪酸:膳食纖維發酵後產生
  • 血清素:由色胺酸轉化而來

短鏈脂肪酸是腸道菌送給身體的訊號分子

人體消化不了的膳食纖維進入大腸後,會由腸道細菌發酵,產生丁酸、乙酸與丙酸等短鏈脂肪酸。它們既是結腸細胞的主要能量來源,也能維持腸道屏障、抑制發炎,還能透過多條路徑把訊號送到大腦。

人體試驗證實:短鏈脂肪酸能讓壓力下的皮質醇反應變小

過去主要經由動物研究,發現短鏈脂肪酸能調節壓力反應。2020年一項三盲隨機對照試驗,首次在人體驗證補充短鏈脂肪酸膠囊(劑量相當於腸道發酵10-20公克阿拉伯木寡糖的產量)能讓皮質醇反應明顯變小,且血液中短鏈脂肪酸升高愈多,皮質醇反應降低愈多。

犬尿氨酸路徑是什麼?壓力如何改變色胺酸的代謝?

色胺酸(Tryptophan)是一種必須從食物中攝取的胺基酸,常被稱為「血清素的原料」。腸道中的腸嗜鉻細胞(Enterochromaffin cell,簡稱EC細胞)利用色胺酸製造大量血清素,雖「無法直接」進入大腦,但其會留在周邊循環,負責調節腸道蠕動及參與部分代謝功能,以及透過腸腦軸線的影響,間接影響人的情緒感受。

然而,犬尿氨酸途徑(Kynurenine pathway)才是色胺酸的主要代謝通路。此代謝路徑並非完全有害,只是當身體處於慢性發炎或高壓下,此路徑會被過度活化,導致:

  • 合成血清素的原料不足:導致大腦神經毒性產物增加,容易引發焦慮、憂鬱及睡眠障礙
  • 代謝產物不平衡:造成神經細胞過度興奮與損傷

腸道菌相能很大影響色胺酸如何被利用,它們還能把色胺酸轉成吲哚類物質(Indoles),參與調節荷爾蒙與腸道免疫。

四、如何減少慢性壓力對免疫力的影響?照顧免疫與腸道的4大方向

壓力來源不一定能徹底消除,但身體的抗壓性可以被調整。

以下整理5個具研究支持的方式:

1. 維持穩定且充足的睡眠

睡眠本身為支持免疫與修復身體的重要方式,有助於對抗感染與發炎刺激。研究指出,睡眠不足與先天及後天免疫指標的改變有關,可能導致慢性發炎,並提高感染與發炎相關疾病的風險。

2. 養成規律的中等強度身體活動

研究發現,平時身體活動量較高者,社區型感染疾病風險約降低31%,感染疾病死亡風險約降低37%。同一研究也指出,疫苗接種後搭配身體活動,其產生的抗體濃度較高。

世界衛生組織指引建議成人每週進行150–300分鐘中等強度、或75–150分鐘高強度的有氧院動,並規律進行肌力訓練,且所有年齡層都應盡量避免長時間久坐。

3. 長期且持續的壓力調適

2024年發表的統合分析發現,壓力管理介入能影響皮質醇指標,其中正念、冥想與放鬆介入呈現改善效果,顯示這些練習除了心理感受,也能影響生理壓力反應。面對長期且持續的壓力,調適的關鍵不在於「一次性消除」,而是建立一套可持續的日常儀式,讓大腦與身體習慣定期釋放神經緊繃。

4. 照顧腸道健康,提升整體免疫防線與腸道韌性

2021 年《Cell》的一項小型隨機飲食研究發現,高發酵食品組的菌相多樣性增加,部分發炎相關指標下降;高纖組則出現不同的菌相功能與免疫反應。這顯示,日常飲食不只影響腸道菌相變化,也能影響它們的代謝活動,以及身體的免疫調節。

關注提升「腸道韌性」:菌相難免受到擾動,但有能力恢復至原本或相近狀態。健康的重點不在於菌群永遠不變,而是整個微生物群落能否在變動中維持功能,抵禦外界刺激,並在受擾動後恢復。多樣的菌群間能分擔代謝任務,是支持韌性的重要基礎。

研究證實:PS128 精神益生菌,有助穩定情緒、提升腸道韌性

「植物乳桿菌PS128」是一種透過「菌腸腦軸」來影響中樞神經系統功能的精神益生菌(Psychobiotics),能夠調節腦中多巴胺濃度,對憂鬱、壓力、睡眠、慢性發炎等症狀 具舒緩效果,幫助降低壓力賀爾蒙,阻斷壓力對身體的傷害。

2021年刊登於《Frontiers in Nutrition》的一項先導研究,由高壓科技從業人員連續8周補充PS128益生菌後,明顯感到壓力、焦慮分數下降,正向情緒、生活滿意度與自評身心健康有所提升;科學數據更顯示,唾液中的皮質醇也出現下降變化。另一項刊登於《Brain Research》的研究也發現到,補充PS128益生菌後,有助於大腦多巴胺濃度增加。

益生菌講究「菌株特異性」

「並非所有益生菌,都具有相同作用」,PS128 精神益生菌便是以菌腸腦軸及壓力調節為研究方向的特定菌株,從根本建立完整的腸道韌性,有助於整體身心健康的提升。

腸道為身體最大的免疫防線,照顧腸道應放在持之以恆的飲食習慣,而非追求短時間內增加某一種好菌。

參考資料

  1. Almand AT, Anderson AP, Hitt BD, Sitko JC, Joy RM, Easter BD, Almand EA. The influence of perceived stress on the human microbiome. BMC Research Notes (BioMed Central). 2022 Jun 3.
  2. Alotiby A. Immunology of Stress: A Review Article. Journal of Clinical Medicine (MDPI). 2024 Oct 25.
  3. Ayling K, et al. Psychological Predictors of Self-reported COVID-19 Outcomes: Results From a Prospective Cohort Study. Annals of Behavioral Medicine (Oxford University Press). Published online 2022 Jan 3.
  4. Badawy AA, Dawood S, Bano S. Kynurenine pathway of tryptophan metabolism in pathophysiology and therapy of major depressive disorder. World Journal of Psychiatry (Baishideng). 2023 Apr 19.
  5. Balcerowska M, Kwaśnik P. The multifaceted impact of stress on immune function. Molecular Biology Reports (Springer). 2025 Oct 10.
  6. Berding K, et al. Feed your microbes to deal with stress: a psychobiotic diet impacts microbial stability and perceived stress in a healthy adult population. Molecular Psychiatry (Springer Nature). 2023;28(2).
  7. Brown SJ, et al. Sex- and suicide-specific alterations in the kynurenine pathway in the anterior cingulate cortex in major depression. Neuropsychopharmacology (Springer Nature). Published online 2023 Sep 21.
  8. Bull FC, et al. World Health Organization 2020 guidelines on physical activity and sedentary behaviour. British Journal of Sports Medicine (BMJ). 2020;54(24).
  9. Chastin SFM, et al. Effects of Regular Physical Activity on the Immune System, Vaccination and Risk of Community-Acquired Infectious Disease in the General Population: Systematic Review and Meta-Analysis. Sports Medicine (Springer). 2021 Apr 20.
  10. Cohen S. Psychosocial Vulnerabilities to Upper Respiratory Infectious Illness: Implications for Susceptibility to COVID-19. Perspectives on Psychological Science (SAGE). 2021;16(1).
  11. Dalile B, Vervliet B, Bergonzelli G, Verbeke K, Van Oudenhove L. Colon-delivered short-chain fatty acids attenuate the cortisol response to psychosocial stress in healthy men: a randomized, placebo-controlled trial. Neuropsychopharmacology (Springer Nature). 2020 Jun 10.
  12. Dalile B, et al. Extruded Wheat Bran Consumption Increases Serum Short-Chain Fatty Acids but Does Not Modulate Psychobiological Functions in Healthy Men: A Randomized, Placebo-Controlled Trial. Frontiers in Nutrition (Frontiers). 2022 May 26.
  13. Dunn TJ, Dimolareva M. The effect of mindfulness-based interventions on immunity-related biomarkers: a comprehensive meta-analysis of randomised controlled trials. Clinical Psychology Review (Elsevier). 2022.
  14. Gao F, et al. Stressful events induce long-term gut microbiota dysbiosis and associated post-traumatic stress symptoms in healthcare workers fighting against COVID-19. Journal of Affective Disorders (Elsevier). Published online 2022 Feb 12.
  15. Gao K, Mu CL, Farzi A, Zhu WY. Tryptophan Metabolism: A Link Between the Gut Microbiota and Brain. Advances in Nutrition (Oxford University Press). 2020;11(3).
  16. Garbarino S, et al. Role of sleep deprivation in immune-related disease risk and outcomes. Communications Biology (Nature Portfolio). 2021 Nov 18.
  17. Guidi J, Lucente M, Sonino N, Fava GA. Allostatic Load and Its Impact on Health: A Systematic Review. Psychotherapy and Psychosomatics (Karger). 2021;90(1).
  18. Gutierrez Nunez S, et al. Chronic Stress and Autoimmunity: The Role of HPA Axis and Cortisol Dysregulation. International Journal of Molecular Sciences (MDPI). 2025 Oct 14.
  19. Herhaus B, Joisten N, Wessels I, Zimmer P, Petrowski K. How acute physical and psychological stress differentially influence the kynurenine pathway: A randomized cross-over trial. Psychoneuroendocrinology (Elsevier). 2021;134.
  20. Herselman MF, et al. The Effects of Walnuts and Academic Stress on Mental Health, General Well-Being and the Gut Microbiota in a Sample of University Students: A Randomised Clinical Trial. Nutrients (MDPI). 2022 Nov 11.
  21. Hunt C, et al. Effect of Immune Activation on the Kynurenine Pathway and Depression Symptoms – A Systematic Review and Meta-Analysis. Neuroscience & Biobehavioral Reviews (Elsevier). 2020 Aug 24.
  22. Jain M, Anand A, Sharma N, Shamim MA, Enioutina EY. Effect of Probiotics Supplementation on Cortisol Levels: A Systematic Review and Meta-Analysis. Nutrients (MDPI). 2024 Oct 21.
  23. Knezevic E, Nenic K, Milanovic V, Knezevic NN. The Role of Cortisol in Chronic Stress, Neurodegenerative Diseases, and Psychological Disorders. Cells (MDPI). 2023 Nov 29.
  24. La Torre D, Van Oudenhove L, Vanuytsel T, Verbeke K. Psychosocial stress-induced intestinal permeability in healthy humans: What is the evidence? Neurobiology of Stress (Elsevier). 2023 Oct 6.
  25. Leigh SJ, et al. The impact of acute and chronic stress on gastrointestinal physiology and function: a microbiota–gut–brain axis perspective. The Journal of Physiology (The Physiological Society/Wiley). 2023.
  26. Ma L, et al. Psychological Stress and Gut Microbiota Composition: A Systematic Review of Human Studies. Neuropsychobiology (Karger). Published online 2023 Sep 6.
  27. Madison AA, Shrout MR, Renna ME, Kiecolt-Glaser JK. Psychological and Behavioral Predictors of Vaccine Efficacy: Considerations for COVID-19. Perspectives on Psychological Science (SAGE). 2021;16(2).
  28. Mar JS, et al. IL-22 alters gut microbiota composition and function to increase aryl hydrocarbon receptor activity in mice and humans. Microbiome (BioMed Central). 2023 Mar 9.
  29. Marx W, et al. The kynurenine pathway in major depressive disorder, bipolar disorder, and schizophrenia: a meta-analysis of 101 studies. Molecular Psychiatry (Springer Nature). 2021 Aug.
  30. Mora-Navarro MA, et al. The Microbiota-Gut-Brain Axis: Tryptophan Metabolism and Potential Therapeutic Strategies. In: Himmerich H, editor. Weight Loss – A Multidisciplinary Perspective. IntechOpen; 2024 Jun 10.
  31. Morys J, Małecki A, Nowacka-Chmielewska M. Stress and the gut-brain axis: an inflammatory perspective. Frontiers in Molecular Neuroscience (Frontiers). 2024 Jul 18.
  32. Myint K, et al. Effects of stress associated with academic examination on the kynurenine pathway profile in healthy students. PLoS ONE (Public Library of Science). 2021 Jun 3.
  33. O’Riordan KJ, et al. Short chain fatty acids: microbial metabolites for gut-brain axis signalling. Molecular and Cellular Endocrinology (Elsevier). 2022 Apr 15.
  34. Ravi M, Miller AH, Michopoulos V. The Immunology of Stress and the Impact of Inflammation on the Brain and Behavior. BJPsych Advances (Cambridge University Press). 2021 Mar 5.
  35. Roth W, et al. Tryptophan Metabolism and Gut-Brain Homeostasis. International Journal of Molecular Sciences (MDPI). 2021;22(6).
  36. Vasant DH, et al. British Society of Gastroenterology guidelines on the management of irritable bowel syndrome. Gut (BMJ). 2021;70(7).
  37. Wang M, Guo J, Hart AL, Li JV. Indole-3-Aldehyde Reduces Inflammatory Responses and Restores Intestinal Epithelial Barrier Function Partially via Aryl Hydrocarbon Receptor (AhR) in Experimental Colitis Models. Journal of Inflammation Research (Dove Medical Press). 2023 Dec 6.
  38. Wastyk HC, et al. Gut-microbiota-targeted diets modulate human immune status. Cell (Cell Press). 2021 Aug 5.
  39. Wu X, et al. Involvement of kynurenine pathway between inflammation and glutamate in the underlying etiopathology of CUMS-induced depression mouse model. BMC Neuroscience (BioMed Central). 2022 Nov 10.

人體 7 成免疫細胞在腸道!解析「腸道韌性」如何決定免疫力與恢復速度

0

感冒拖很久、感染後的發炎反應、接連感染,以及身體尚未恢復日常活動,都可能讓人感覺「一直沒好」。理解免疫健康,除了看抵禦感染的能力,也要看免疫系統能否調節發炎、在受到挑戰後恢復平衡。

壓力與睡眠是其中的重要因素。研究指出,心理壓力與較短的睡眠時間,和接觸病毒後容易出現感冒症狀的機率有關。除了生活因素,身體內主要支持免疫運作的腸道也值得關注。

腸道是參與免疫調節的重要部位,人體有約7成的免疫細胞集中在腸道。腸道菌群及其代謝物能協助維持腸道屏障,並調節免疫反應。關注腸道健康,除了菌相組成,也需要看它在飲食改變、感染或藥物使用後,能否持續發揮這些功能。這種抵抗擾動、受到影響後恢復穩定的能力,稱為「腸道韌性」。

因此,全面提升免疫健康的方向,應同時涵蓋睡眠、壓力管理、腸道菌相培養與合理用藥,才能兼顧日常防禦及受到擾動後的恢復。

一、感冒為什麼拖很久?從感染、發炎與恢復看原因

「容易生病」與「生病後恢復慢」,反映的是不同問題。前者涉及接觸病原的機會與感染後是否發病;後者則需要觀察症狀持續的原因,以及日常活動恢復的進度。

症狀還在,是因為感染一直沒好嗎?

感冒的不適,絕大部分其實不是病毒直接破壞身體造成的,多來自免疫系統對急性期感染的反應,產生鼻塞、喉嚨痛及全身不適等症狀,即使急性期的不適已減輕,部分症狀仍可能延續。例如:

  • 症狀消退後,又出現新一輪不適:再次接觸病原,發生另一次呼吸道感染
  • 其他症狀減輕,但仍持續咳嗽:感染後的呼吸道發炎與敏感性增加,使症狀延續
  • 症狀消失,卻仍無法恢復平常活動:單一症狀改善,與整體生活功能恢復的進度不同

為什麼同樣生病,恢復速度卻不同?

恢復速度主要取決於個體免疫力的強弱、病毒量、生活作息以及「原有的健康基礎」。當病毒入侵時,免疫並非從零開始,而是消耗身體過去累積的健康資產,包括以下:

  • 腸道菌叢的健全度:優良的腸道菌叢能持續訓練免疫細胞保持敏銳,病毒一來就能精準打擊。
  • 代謝與血管基礎:血管內皮健康,新陳代謝順暢。生病時,免疫細胞能順著密集的微血管網絡,快速抵達呼吸道戰場。
  • 蛋白質與微量元素儲存量:體內維生素D、鋅、鐵等微量元素充足,身體就能更快把受損的黏膜修補好。
  • 抗體的豐富度:過去生活型態多樣、有定期接種疫苗(如流感疫苗),體內的抗體豐富。就算是新病毒,但可能與過去某種病毒相似,免疫系統可以快速反應。

二、免疫健康為什麼也要看恢復力?防禦與修復同樣重要

2023年發表於《Nature Communications》的研究,將「免疫韌性」描述為在發炎壓力下,維持功能、同時控制發炎的能力。理解恢復力,需要從生病前的狀態、感染期間的變化,觀察到康復後免疫系統是否重新穩定。

以下為免疫韌性(Resilience)的三個核心面向:

  • 維持防禦:面對感染時,保有有效的免疫功能
  • 調節發炎:在啟動防禦的同時,限制過度或持續的發炎
  • 恢復穩定:受到擾動後,重新建立較佳的免疫狀態

若身體缺乏恢復力,即使病毒被殺光了,也會深陷「慢性發炎」或「組織受損」而長期處於亞健康狀態。

下表呈現免疫力與恢復力的差異:

維度免疫力(防禦與殺敵)恢復力(修補與再生)
主要能力阻擋病原體、吞噬病毒、製造抗體抑制過度發炎、修補黏膜、重建能量儲備
觀察指標是否容易被傳染、會不會反覆感冒生病後多久恢復精神、會不會留下慢性咳嗽
核心關鍵白血球活性、抗體數量、淋巴系統自律神經彈性、組織營養庫存、線粒體健康

談到免疫調節,為什麼需要關注腸道?

人體約有7成的免疫細胞(包括T細胞、B細胞及巨噬細胞等)都集中在腸道黏膜組織(GALT)周圍。腸道不僅負責消化吸收,更是人體抵禦外來病原體最重要的防線。腸道調控全身的免疫反應,主要有以下三個生理機制:

1. 腸道黏膜是身體面積最大的防禦屏障

腸道黏膜的總表面積非常龐大,每天接觸大量隨食物進入的外來物質,包括各類細菌、病毒與潛在抗原。

  • 物理防線:腸道上皮細胞之間由緊密連接蛋白(Tight Junction Proteins)相互扣合,形成一道嚴密的屏障,阻止有害物質滲入血液循環。
  • 體液免疫:黏膜表面會分泌高濃度的分泌型免疫球蛋白A(sIgA),能中和病原體,阻止其與細胞接觸。

2. 腸道菌叢引導免疫細胞的發育與平衡

腸道內龐大的共生菌群(微生物組),與體內的免疫細胞存在著密不可分的雙向溝通:

  • 訓練免疫耐受性:健全的腸道菌叢能引導免疫細胞精準辨識抗原。若免疫反應過於遲鈍,人體容易遭受感染;若過於敏感,則會引發過敏或自體免疫疾病。腸道好菌能協助維持「免疫平衡」狀態。
  • 產生抗發炎代謝物:當共生菌分解膳食纖維時,會產生短鏈脂肪酸(SCFAs),能促進調節型T細胞(Treg)的分化,分泌抗發炎因子,有效抑制全身性的慢性發炎,並加速生病後的組織修復。

3. 腸腦軸線與壓力對免疫的直接影響

大腦與腸道間存在著密切溝通的通道,稱為腸腦軸(Gut-Brain Axis)。當人體面臨長期慢性壓力時,皮質醇會削弱腸道黏膜的屏障功能,導致細胞間的緊密連接鬆弛,引發微量的發炎物質滲漏全身,使外周免疫細胞長期處於耗損與疲勞狀態。

三、什麼是腸道韌性?菌相受到擾動後如何恢復?

「腸道韌性」(Gut Resilience)是指腸道微生態系統在遭遇外力干擾(如抗生素、腸胃炎、高壓力、感染)後,抵抗病理變化並自主恢復至原健康平衡狀態的能力。其復原機制主要有由以下三項:

1. 核心菌種的隱蔽與再定殖(Repopulation)

在面臨毀滅性干擾時,某些關鍵共生菌能深入隱匿於結腸黏液層(Mucus Layer)或腸絨毛隱窩內,避開藥物或病原體衝擊。當干擾結束,這些「種子菌」會重新移居至腸腔,重建微生態秩序。

2. 益生質代謝與微環境修復

菌相的復原速度,高度取決於宿主的飲食基質。殘存的好菌利用非消化性寡糖等益生質進行發酵,產生短鏈脂肪酸(SCFAs)。其中,丁酸鹽(Butyrate)能直接為上皮細胞供能,加速修補黏膜屏障,並降低腸道pH值,形成利於好菌繁衍、抑制機會性病原菌的環境。

3. 微生物多樣性的功能冗餘(Functional Redundancy)

具備高度多樣性的菌相,內部存在多個親緣關係不同的菌種,能執行相同代謝功能。即使部分菌種在擾動中被清除,其他菌種亦能迅速遞補其生態位,維持基礎免疫調控與代謝功能,避免系統走向不可逆的慢性失衡。

菌相恢復與病程康復的關聯,有哪些人體證據?

2022年《Gut》發表的一項前瞻性研究,納入了106名COVID-19患者與68名未感染對照者,追蹤至感染後六個月,分析共258份糞便樣本,比較菌相變化與感染後持續症狀的關聯。

研究發現,六個月後COVID-19感染症狀已消失的受試者,其菌相組成已接近未感染對照組;仍有持續症狀者,則呈現與對照組不同的菌群特徵,部分與丁酸代謝相關的菌群也與症狀的持續有關聯。

四、如何維持健康的腸道韌性?4 個日常方向是關鍵

維持健康的腸道韌性,核心在於「創造多樣化的微環境」與「提供充足的代謝原料」,使菌相在遭遇突發性干擾時,具備足夠的緩衝能力。臨床實證與公共衛生指引指出,以下四個日常方向是建構高韌性腸道環境的核心關鍵:

1. 廣泛攝取多元植物性飲食:建立「功能冗餘」基礎

腸道菌相的多樣性,決定了韌性的強度。

  • 實踐方式:每日飲食應儘可能涵蓋不同種類、顏色的原形植物,包含全穀雜糧、蕈菇類、堅果、莢豆類及當季蔬果。
  • 生理機制:不同的細菌偏好分解不同的膳食纖維與植物多酚。飲食種類越多元,越能維持多種具備相同代謝功能的菌群(功能冗餘)。即使某單一菌種受損,其生態位也能立刻被其他菌種遞補。

2. 精準補充益生菌與益生質:儲備微生態環境的修復原料

  • 日常飲食來源:洋蔥、大蒜、牛蒡、蘆筍、香蕉及燕麥,皆富含菊糖(Inulin)與低聚寡糖(Oligosaccharides)。
  • 生理機制: 充足的益生質能確保原生菌群在遭遇擾動後,有足夠的能量進行再定殖(Repopulation),並透過分泌短鏈脂肪酸來修復腸道黏膜的緊密連接蛋白,維持屏障完整性。

益生菌的補充則能與益生質產生協同效應。攝取如乳酸桿菌或雙歧桿菌等外源性好菌,不僅能暫時性調整腸道酸鹼值、抑制壞菌滋生,更能在定殖過程中,透過菌相間的交互餵養(Cross-feeding),刺激腸道原生核心菌株(如嗜黏蛋白阿克曼氏菌Akkermansia或Bacteroides等)的生長。

因此,將「補菌」與「養菌」並行,才能真正極大化腸道韌性。

3. 調控慢性壓力與睡眠:穩定「腸腦軸線」神經內分泌

  • 實踐方式:建立規律的生理時鐘,維持每日7-8小時的良好睡眠,並適度透過有氧運動、冥想或深呼吸調控壓力。
  • 生理機制:長期高壓引發的皮質醇過度分泌,會直接增加腸道黏膜通透性(腸漏現象)。控制壓力水平能穩定自律神經,維持結腸正常的蠕動與黏液層(Mucus Layer)分泌,為核心菌種提供良好的微生態環境。

4. 避免非必要的醫療與飲食干擾:減少人為「生態浩劫」

抗生素是現代醫學對抗細菌感染的利器,然而其在消滅致病菌的同時,也會同時摧毀腸道內的有益菌群,導致菌相多樣性在短時間內急劇下降。

  • 實踐方式:拒絕濫用抗生素(必須遵照醫囑,不自行購買使用、亦不自行停藥);減少攝取高加工食品、人工添加物、精緻糖及過量酒精。
  • 生理機制:廣效性抗生素與食品添加物(如某些人工乳化劑)會直接破壞腸道菌相結構,並對黏膜造成化學性擾動。減少這些外源性傷害,能讓腸道微生態維持在相對穩定的狀態(Eubiosis)。

若需使用抗生素療程,更需加強攝取高纖與發酵食品,以加速腸道黏膜屏障的修復與菌相多樣性的重建。

總體而言,感冒拖很久、反覆感染,值得關注的不只是「免疫力夠不夠」,也包括身體能否妥善調節發炎、逐步恢復日常狀態。腸道健康是免疫力的基石,決定了身體防禦與恢復系統的強弱。藉由飲食調整與益生菌的補充,提升整體韌性,就能有效強化腸道屏障,守護人體最大的免疫防線。

參考資料

  1. Eccles R. Common cold. Frontiers in Allergy. 2023;4: 1224988.
  2. Liang K, Hui P, Green S. Postinfectious cough in adults. CMAJ. 2024;196:E157.
  3. Ahuja SK, et al. Immune resilience despite inflammatory stress promotes longevity and favorable health outcomes including resistance to infection. Nature Communications. 2023;14: 3286.
  4. Munro APS, Jones CE. Immunity debt and unseasonal childhood respiratory viruses. British Journal of Hospital Medicine. 2022;83(9): 1–3.
  5. Zhou H, Tang L, Fenton KA, Song X. Exploring and evaluating microbiome resilience in the gut. FEMS Microbiology Ecology. 2025;101(5): fiaf046.
  6. Nguyen ON, et al. Obesity in Recovery From Influenza-Like Illness and Effectiveness of Oseltamivir. Influenza and Other Respiratory Viruses. 2025;19: e70185.
  7. Alotiby A. Immunology of Stress: A Review Article. Journal of Clinical Medicine. 2024;13(21): 6394.
  8. Balcerowska M, Kwaśnik P. The multifaceted impact of stress on immune function. Molecular Biology Reports. 2025;52: 1008.
  9. Cohen S, et al. Chronic stress, glucocorticoid receptor resistance, inflammation, and disease risk. Proceedings of the National Academy of Sciences. 2012;109(16): 5995–5999.
  10. James A, McGregor R, Lorenz N, Moreland NJ, Moyers-Gonzalez M. Modelling immunity gaps to quantify infection resurgences. Royal Society Open Science. 2025;12(7): 250030.
  11. Manoharan MS, et al. The 15-Year Survival Advantage: Immune Resilience as a Salutogenic Force in Healthy Aging. Aging Cell. 2025;24(7): e70063.
  12. Mann ER, Lam YK, Uhlig HH. Short-chain fatty acids: linking diet, the microbiome and immunity. Nature Reviews Immunology. 2024;24(8): 577–595.
  13. Liu Q, et al. Gut microbiota dynamics in a prospective cohort of patients with post-acute COVID-19 syndrome. Gut. 2022;71(3): 544–552.
  14. Walsh NP, et al. Good perceived sleep quality protects against the raised risk of respiratory infection during sleep restriction in young adults. Sleep. 2023;46(1): zsac222.
  15. Wastyk HC, et al. Gut-microbiota-targeted diets modulate human immune status. Cell. 2021;184(16): 4137–4153.e14.
  16. Anthony WE, et al. Acute and persistent effects of commonly used antibiotics on the gut microbiome and resistome in healthy adults. Cell Reports. 2022;39(2): 110649.
  17. Kenealy T, Arroll B. Antibiotics for the common cold and acute purulent rhinitis. Cochrane Database of Systematic Reviews. 2025;11: CD000247.
  18. 衛生福利部疾病管制署。流感疫情傳播風險持續,提醒民眾如有呼吸困難、發紺等流感危險徵兆,儘速就醫。2025.3.11,擷取自https://www.mohw.gov.tw/cp-16-81807-1.html
  19. 衛生福利部食品藥物管理署。守護兒童用藥安全 使用抗生素四不一要。2025.7.23,擷取自 https://www.mohw.gov.tw/cp-16-83181-1.html
  20. Zhao Y, Dong BR, Hao Q. Probiotics for preventing acute upper respiratory tract infections. Cochrane Database of Systematic Reviews. 2022;8: CD006895.

中年後抗壓力不是靠意志力?腦科學新發現:心理韌性的差異,藏在腸道菌相裡

0

文章目錄

中年後面對壓力與疾病,身體恢復的時間似乎變長,情緒與睡眠也更易受影響,甚至日常中的小事,都變得比過去更難消化。

近年人體研究發現,人體老化並非完全線性,不同系統甚至可能有不同的老化速度自主神經、壓力荷爾蒙、免疫與代謝系統的調節能力改變,都可能讓身體面對壓力時,需要更長時間才能恢復,也可能累積「異位負荷」(allostatic load)。

腸道也是壓力與情緒調節的關鍵之一。人體約95%的「血清素」、50%的「多巴胺」是在腸道中生成。根據研究,腸道菌相可透過神經系統、HPA軸、免疫訊號及短鏈脂肪酸等代謝物與大腦雙向溝通;心理壓力也可能反過來改變腸胃功能與微生物環境。因此,中年後所感受到的「不耐壓」,更適合從整體生理調節與恢復能力來理解,而非單純歸因於心理或意志力問題。

近年相關研究逐漸將焦點從單純的「腸道好菌夠不夠多」,轉向菌相組成的穩定性,與受到擾動後的恢復能力。本文將從非線性老化、菌腦腸軸與「腸道韌性」三個角度,進一步解析中年後抗壓與恢復力可能出現變化的原因。

一、為什麼中年後感覺抗壓性下降?其實是生理在改變

壓力並不只是心理感受,而是一套真實的生理反應。當大腦感受到威脅或負荷時,自主神經與HPA軸會被啟動,促使身體調整心跳、能量運用與皮質醇分泌,以因應短期挑戰。因此,短期壓力並不一定有害。問題常出現在壓力的長時間累積、反覆出現,或身體缺乏足夠的恢復時間。

「生物韌性(biological resilience)」指的是個體遭遇壓力後,能夠抵抗並恢復原本結構與功能的能力,此能力可能受到年齡、疾病、生活型態與長期壓力等因素影響。

2024年一項《Nature Mental Health》人體研究納入116名健康成人,依心理韌性分為高、低兩組,並進行腦部磁振造影與糞便菌相分析。結果發現,高韌性組除了焦慮、憂鬱分數較低,在情緒與認知相關腦區也呈現不同活動特徵;其腸道微生物功能則較偏向抗發炎、能量代謝與維持腸道屏障。

這項研究顯示,心理韌性的差異可能不只反映在大腦,也伴隨不同的腸道微生物功能特徵。

二、腸腦軸如何影響情緒?雙向溝通機制一次看懂

腸道與大腦之間存在著稱為「腸腦軸」(gut-brain axis)的複雜雙向溝通網絡。它並非單一器官或單一路徑,而是由腸道菌相、腸神經系統、自律神經、免疫及內分泌系統,加上微生物代謝物共同構成。

腸腦之間究竟怎麼溝通?

迷走神經:連結腸道與大腦的重要神經通路

迷走神經是副交感神經系統的重要組成,腸道中的營養物質、微生物代謝物與腸壁感覺訊號,都可能參與迷走神經訊號傳遞,進而與大腦的壓力及生理調節產生關聯。2025年一項隨機對照試驗進一步發現,憂鬱症患者接受多菌株益生菌介入3個月後,部分迷走神經功能指標與特定菌群同步改變。

HPA軸:將心理壓力轉換成生理反應

下視丘-腦下垂體-腎上腺軸(HPA axis)是人體重要的壓力調節系統。當大腦感受到壓力,下視丘促使腦下垂體分泌促腎上腺皮質素,再刺激腎上腺釋放皮質醇。短期啟動HPA軸有助於能量提升,但長期或反覆壓力,可能影響皮質醇節律與壓力回饋調節。

由於皮質醇會作用於腸道上皮、免疫與腸內分泌系統,因此心理壓力也可能透過HPA軸改變腸道生理環境,形成腸腦之間的雙向影響。

微生物代謝物:傳遞腸道的化學訊號

短鏈脂肪酸(SCFAs)主要包括乙酸、丙酸與丁酸,是腸道菌發酵膳食纖維的重要代謝產物,可能透過免疫、神經內分泌與血液循環參與腸腦軸調節。2020年一項66名健康男性的隨機安慰劑對照試驗發現,補充SCFAs後,受試者面對心理社會壓力時的皮質醇反應較低。其他相關研究則顯示,不同代謝物在不同生理環境下,可能參與不同的腸腦軸功能。

免疫與腸道屏障:連結腸道與全身訊號

腸道同時是重要的屏障與免疫組織。飲食、感染與壓力等因素可能影響腸道通透性、免疫訊號,以及微生物與宿主之間的互動。

腸道菌相的好壞,不只看菌種多寡

腸道菌相是一個具有代謝功能的生態系,不能只用「菌種越多越健康」或「好菌、壞菌」來判斷。需包含下面兩個重點:

  • 特異性(diversity) : 腸道中菌種的豐富程度與均勻分布程度。菌種越多元、各菌種比例越均衡,腸道生態系統越穩定,對環境擾動(如飲食改變、抗生素、壓力)的緩衝能力也越強。低多樣性常與肥胖、發炎性腸道疾病、代謝症候群等狀況相關。
  • 冗餘性 (redundancy) : 指不同菌種能執行相同或相似功能(如產生短鏈脂肪酸、分解特定纖維)的程度。當某個菌種因外在因素減少或消失時,若有其他菌種可以「補位」執行同樣的代謝功能,腸道整體的功能穩定性就不會受到太大影響。冗餘性高代表功能韌性強,即使物種組成有變動,生理功能仍可維持。

2024一項全球宏基因體研究發現,在不同生命階段,不只菌相組成會改變,微生物代謝功能也會隨年齡、飲食等因素出現差異。因此,腸腦軸研究關注的不只是「好菌有沒有增加」,而是菌相結構與代謝功能如何改變,以及是否與神經、免疫、內分泌等宿主反應同步出現。

三、「斷崖式衰老」是真的嗎?研究如何看待不同階段的老化

「斷崖式衰老」是大眾化說法,並非正式醫學診斷。近年較精確的概念是「非線性老化(nonlinear aging)」:老化持續進行,但不同生理系統的變化速度未必始終相同。 2024年《Nature Aging》追蹤108名25至75歲成人,分析蛋白質體、代謝體、脂質體及微生物等多層次資料,發現大量分子變化並非線性,而是在特定階段出現較密集的變化波峰。

「生物年齡」與「實際年齡」的差距,也與健康狀態有關

假設同樣是50歲,身體的老化程度可能並不一樣。

「實際年齡(Chronological Age)」代表從出生到現在經過的時間;「生物年齡(Biological Age)」則是根據身體各項生理指標,估算目前呈現出的老化程度。

2023年《Nature》研究分析超過5千名成人後發現,同一人的不同器官,老化速度也可能不同。例如心臟、腎臟或免疫系統,可能各自呈現不同程度的老化,而老化較快的器官也與相關疾病及較高的健康風險有關。

2024年《Nature Medicine》另一項大型研究也發現,若從血液蛋白推估出的生物年齡高於實際年齡,通常也與較高的衰弱程度、較差的身體與認知功能,較多慢性疾病有所關聯。

因此,同年齡的人,健康狀況與身體老化速度仍可能有很大的差異。「實際年齡」的增加,並不能完全代表身體目前的老化狀態,更應關注的是:

  1. 受到壓力或外界擾動後時,身體是否能維持穩定。
  2. 壓力解除後,生理系統能否有效恢復。
  3. 不同器官與調節系統,是否仍具備足夠的適應能力。

四、中年後腸道菌相如何改變?菌相重塑與發炎、壓力調節的關聯

腸道老化的相關研究,並非單純「年紀越大,菌種越少」,而是從「有多少菌」,進一步轉向觀察:

  • 原本常見的菌群比例是否改變
  • 與健康相關的菌,是否逐漸減少
  • 不同菌群的代謝功能,是否受到影響
  • 受到飲食、壓力或藥物影響後,菌相是否更難恢復穩定

腸道菌相變化只跟年齡有關嗎?飲食與生活型態的長期影響是關鍵

2022年發表於《Nature Aging》的一項人體研究分析304名65歲以上成人,研究團隊同時擁有這群受試者長達26年的飲食、活動量、藥物、臨床檢驗與生活型態資料。結果發現,過去的藥物使用、身體活動、飲食習慣及部分血液生化指標,都與晚年的腸道菌相有所關聯。

因此,中年後腸道菌相改變不能全部歸因於「老化」。更可能是生理狀態與長期生活史共同累積的結果。

常見影響因素包括:

  1. 飲食中膳食纖維是否充足
  2. 身體活動量是否逐漸下降
  3. 睡眠與心理壓力是否長期失衡
  4. 抗生素與其他藥物的使用情況
  5. 是否伴隨代謝疾病、慢性疾病或衰弱
  6. 腸道生態是否具有足夠的穩定性與恢復能力

菌相重塑與低度發炎:人體研究發現「共存關聯」

老化同時常伴隨另一個生理現象:慢性低度發炎(inflammaging)。與急性發炎不同,是隨著免疫老化、代謝狀態、脂肪組織、慢性疾病及生活因素等長期累積,形成較持續的低度發炎背景。

健康狀態下,腸道上皮、黏液層與免疫系統共同形成屏障,限制腸腔內微生物及其成分進入體內。當屏障功能受損,部分細菌來源成分如脂多醣(LPS),進入循環的機會增加,並活化發炎反應。

全身性的發炎訊號,也可能透過血液、神經與免疫溝通影響大腦功能。大型人體研究發現,憂鬱症患者平均而言具有較高的部分發炎指標,如IL-6與TNF-α等。另一項高齡者研究顯示,衰弱與非衰弱族群的菌相多樣性雖無明顯差異,但其組成不同,造成衰弱族群同時具有較高的發炎相關指標。解釋了壓力調節,需要從腸道、免疫與大腦共同組成的整體系統來理解。

五、中年後如何維持抗壓與恢復力?從「腸道韌性」理解關鍵

健康的腸道並不是一套永遠不變的菌相,具有高度動態、彈性(Resilience)的平衡系統。

什麼是腸道韌性?不是「完全不變」,而是受干擾後仍能恢復

在生態學中,彈性(Resilience)用來描述一個系統面對外界擾動後,仍能維持或重新恢復穩定狀態的能力,並可拆分成以下三個層次:

  • 抗擾動能力:面對外界改變時,不容易產生劇烈失衡
  • 功能維持能力:即使部分菌種改變,重要功能仍可持續
  • 恢復能力:擾動解除後,菌相與功能重新建立穩定生態

豐富的「微生物功能」比單純增加菌種更重要

腸道中許多生理功能並不是只由單一菌種負責。

不同微生物可能具有部分重疊的代謝能力,例如不同菌群參與複合碳水化合物分解、交叉餵養或短鏈脂肪酸相關代謝。不同微生物可以執行部分相似功能的現象,稱為功能冗餘(functional redundancy)。它被認為是微生物生態系維持穩定與韌性的可能機制之一。 當某些菌因短期擾動而減少,如果其他微生物仍能維持相似的代謝功能,整個生態系就不會立即崩潰。因此,比起單純追求「增加幾種好菌」,更完整的方向應是維持具有多元代謝能力、功能互補與恢復能力的微生物生態系。

腸道韌性與心理抗壓力有什麼關係?

2023年發表於《Molecular Psychiatry》的一項隨機對照研究,將45名18至59歲健康成人分成「精神益生菌飲食」與控制飲食兩組,介入4週,並同步分析糞便菌相、代謝體與壓力指標。

研究結果發現,菌相的波動程度(microbial volatility)與壓力變化存在關聯,而飲食遵從程度越高的人,自覺壓力下降也越明顯。顯示了微生物生態穩定性與心理壓力變化可能彼此相關,而飲食可能是同時影響兩者的調節因素。

建立良好的腸道韌性?維持菌相功能與恢復力是關鍵

目前並不存在一套適用所有人的「完美菌相」。每人的基礎菌相、飲食、年齡、疾病與用藥不同,甚至出生方式(自然產/剖腹產)都會在早期形塑一個人的菌相基礎。因此目標在於:「提供有利於腸道微生物的生活環境,同時降低不必要的長期擾動。」

1. 提供足夠且多元的微生物可利用底物

膳食纖維是腸道微生物重要的發酵來源之一。

研究發現,高纖飲食雖然沒有顯著提高菌相多樣性,卻增加了菌相中與醣類分解相關的酵素功能。因此,菌相功能可能已經發生變化,即使多樣性數值沒有增加。日常飲食可從蔬菜、水果、全穀類、豆類、堅果與種子等不同植物來源取得多元膳食纖維,而不是集中補充單一種類。

2. 飲食改變應重視長期穩定,而非短期大量補充

一項長達約5個月的纖維介入研究發現,不同人的菌相對各種纖維反應差異明顯,但多數人在介入結束後,菌相逐漸回到個人原本的波動範圍。

這表示腸道菌相具有高度個人化與一定程度的穩定性,並非吃下某種食物後就永久被「改造」。相較於短時間追求大幅「改菌」,長期而規律的飲食環境更符合腸道韌性的概念。

3. 避免不必要的重大擾動

抗生素是目前人體研究最明確的菌相擾動因素之一。在清除致病菌的同時,也可能影響原本共生於腸道中的微生物,使菌相組成、物種豐富度、代謝功能與抗藥性基因分布產生變化。

這並非建議要排斥必要的抗生素治療,而是不應在沒有醫師處方下自行使用抗生素。若必須接受抗生素療程,完成後也應重視腸道菌相的恢復,提供有利於微生物生態重新建立穩定的環境。

4. 不只照顧腸道,也應同時降低身體的長期壓力負荷

腸腦軸是雙向系統。

長期睡眠不足、心理壓力、活動量下降與飲食不規律,都可能同時影響HPA軸、自主神經、代謝及腸胃功能。因此,建立腸道韌性的概念,應放在更完整的生活環境中理解,包括規律飲食、足夠膳食纖維、睡眠、活動量、藥物使用與壓力管理。

中年後的身體變化,往往不是某一個系統單獨造成的。壓力、睡眠、代謝、免疫與腸道菌相彼此牽動,也讓「抗壓力」成為一個比心理感受更複雜的生理議題。與其關注實際年齡增加帶來的改變,更值得照顧的是身體與心理健康。

六、研究證實:PS128 精神益生菌,有助穩定情緒、提升腸道韌性

「植物乳桿菌PS128」是一種透過「菌腸腦軸」來影響中樞神經系統功能的精神益生菌(Psychobiotics),能夠調節腦中多巴胺濃度,對憂鬱、壓力、睡眠、慢性發炎等症狀 具舒緩效果,幫助降低壓力賀爾蒙,阻斷壓力對身體的傷害。

2021年刊登於《Frontiers in Nutrition》的一項先導研究,由高壓科技從業人員連續8周補充PS128益生菌後,明顯感到壓力、焦慮分數下降,正向情緒、生活滿意度與自評身心健康有所提升;科學數據更顯示,唾液中的皮質醇也出現下降變化。另一項刊登於《Brain Research》的研究也發現到,補充PS128益生菌後,有助於大腦多巴胺濃度增加。

益生菌講究「菌株特異性」

「並非所有益生菌,都具有相同作用」,PS128 精神益生菌便是以菌腸腦軸及壓力調節為研究方向的特定菌株,從根本建立完整的腸道韌性,有助於整體身心健康的提升。

參考資料

  1. Leigh SJ, et al. The impact of acute and chronic stress on gastrointestinal physiology and function: a microbiota-gut-brain axis perspective. The Journal of Physiology. 2023;601:4491–4538.
  2. Schneider S, Wright CM, Heuckeroth RO. Enteric nervous system and intestinal epithelial regulation of the gut-brain axis. Journal of Allergy and Clinical Immunology. 2022;150: 513–522.
  3. Rusch JA, Layden BT, Dugas LR. Signalling cognition: the gut microbiota and hypothalamic-pituitary-adrenal axis. Frontiers in Endocrinology. 2023; 14:1130689.
  4. asqualette L, et al. Alterations in Vagal Tone Are Associated with Changes in the Gut Microbiota of Adults with Anxiety and Depression Symptoms. Metabolites. 2024; 14:450.
  5. Mörkl S, et al. Multi-species probiotic supplement enhances vagal nerve function. Gut Microbes. 2025;17:2492377.
  6. Dalile B, et al. Colon-delivered short-chain fatty acids attenuate the cortisol response to psychosocial stress in healthy men. Neuropsychopharmacology. 2020;45:2257–2266.
  7. Shen X, Wang C, Zhou X, et al. Nonlinear dynamics of multi-omics profiles during human aging. Nature Aging. 2024;4:1619–1634.
  8. Oh HS-H, Rutledge J, Nachun D, et al. Organ aging signatures in the plasma proteome track health and disease. Nature. 2023;624:164–172.
  9. Argentieri MA, et al. Proteomic aging clock predicts mortality and risk of common age-related diseases in diverse populations. Nature Medicine. 2024;30:2450–2460.
  10. Ghosh TS, Shanahan F, O’Toole PW. Toward an improved definition of a healthy microbiome for healthy aging. Nature Aging. 2022;2:1054–1069.
  11. Fu J, Zhang J, He R, et al. A global metagenomic atlas of aging identifies a microbiota phase transition associated with disease risk. npj Biofilms and Microbiomes. 2026;12:97.
  12. Kamath S, et al. Distinguishing the causative, correlative and bidirectional roles of the gut microbiota in mental health. Nature Mental Health. 2025;3:1137–1151.
  13. d’Humières C, et al. Perturbation and resilience of the gut microbiome up to 3 months after β-lactams exposure in healthy volunteers. Microbiome. 2024;12:50.
  14. Wastyk HC, et al. Gut-microbiota-targeted diets modulate human immune status. Cell. 2021;184:4137–4153.e14.
  15. Berding K, et al. Feed your microbes to deal with stress: a psychobiotic diet impacts microbial stability and perceived stress in a healthy adult population. Molecular Psychiatry. 2023;28:601–610. Bonaz B, Bazin T, Pellissier S. The Vagus Nerve at the Interface of the Microbiota-Gut-Brain Axis. Frontiers in Neuroscience. 2018;12:49.
  16. Bradley E, Haran J. The human gut microbiome and aging. Gut Microbes. 2024;16(1):2359677.
  17. Dalile B, Fuchs A, La Torre D, Vervliet B, Van Oudenhove L, Verbeke K. Colonic butyrate administration modulates fear memory but not the acute stress response in men: A randomized, triple-blind, placebo-controlled trial. Progress in Neuro-Psychopharmacology & Biological Psychiatry. 2024;131:110939.
  18. Mancabelli L, Milani C, De Biase R, et al. Taxonomic and metabolic development of the human gut microbiome across life stages: a worldwide metagenomic investigation. mSystems. 2024;9(4):e0129423.
  19. Ravikrishnan A, Wijaya I, Png E, et al. Gut metagenomes of Asian octogenarians reveal metabolic potential expansion and distinct microbial species associated with aging phenotypes. Nature Communications. 2024;15:7751.
  20. Gong Q, Sharma M, Glass MC, et al. Multi-omic profiling reveals age-related immune dynamics in healthy adults. Nature. 2025;648:696–706.
  21. Pang S, Chen X, Lu Z, et al. Longevity of centenarians is reflected by the gut microbiome with youth-associated signatures. Nature Aging. 2023;3:436–449.
  22. Larson PJ, Zhou W, Santiago A, et al. Associations of the skin, oral and gut microbiome with aging, frailty and infection risk reservoirs in older adults. Nature Aging. 2022;2:941–955.
  23. Si J, Vázquez-Castellanos JF, Gregory AC, et al. Long-term life history predicts current gut microbiome in a population-based cohort study. Nature Aging. 2022;2:885–895.
  24. Xu Y, Wang Y, Li H, et al. Altered Fecal Microbiota Composition in Older Adults With Frailty. Frontiers in Cellular and Infection Microbiology. 2021;11:696186.
  25. Chen LA, Boyle K. The Role of the Gut Microbiome in Health and Disease in the Elderly. Current Gastroenterology Reports. 2024;26:217–230.
  26. Almarzooqi S, Yassin LK, Alnuaimi F, et al. From association to causality: mechanistic pathways linking the gut microbiome to psychiatric disorders. Translational Psychiatry. 2026.
  27. Bibolar AC, Crecan-Suciu BD, et al. Intestinal Permeability and Depression—A Narrative Review of Selected Blood-Based Biomarkers. International Journal of Molecular Sciences. 2025;26(20):10076.
  28. Safarchi A, Al-Qadami G, Tran CD, Conlon M. Understanding dysbiosis and resilience in the human gut microbiome: biomarkers, interventions, and challenges. Frontiers in Microbiology. 2025;16:1559521.
  29. Anthony WE, Wang B, Sukhum KV, et al. Acute and persistent effects of commonly used antibiotics on the gut microbiome and resistome in healthy adults. Cell Reports. 2022;39(2):110649.
  30. Pihelgas S, Ehala-Aleksejev K, Adamberg S, et al. The gut microbiota of healthy individuals remains resilient in response to the consumption of various dietary fibers. Scientific Reports. 2024;14:22208.
  31. Niesler B, Kuerten S, Demir IE, et al. Disorders of the enteric nervous system — a holistic view. Nature Reviews Gastroenterology & Hepatology. 2021;18:393–410.
  32. Drokhlyansky E, Smillie CS, Van Wittenberghe N, et al. The Human and Mouse Enteric Nervous System at Single-Cell Resolution. Cell. 2020;182(6):1606–1622.e23.
  33. Brookes S, Chen N, Humenick A, et al. Identifying Types of Neurons in the Human Colonic Enteric Nervous System. Advances in Experimental Medicine and Biology. 2022;1383:243–249.
  34. Meerschaert KA, Davis BM, Smith-Edwards KM. New Insights on Extrinsic Innervation of the Enteric Nervous System and Non-neuronal Cell Types That Influence Colon Function. Advances in Experimental Medicine and Biology. 2022;1383:133–139.
  35. Li J, Li Y, Zhao J, et al. Effects of Bifidobacterium breve 207-1 on regulating lifestyle behaviors and mental wellness in healthy adults based on the microbiome-gut-brain axis: a randomized, double-blind, placebo-controlled trial. European Journal of Nutrition. 2024;63(7):2567–2585.
  36. Boehme M, Rémond-Derbez N, Lerond C, et al. Bifidobacterium longum subsp. longum Reduces Perceived Psychological Stress in Healthy Adults: An Exploratory Clinical Trial. Nutrients. 2023;15(14):3122.
  37. Edebol Carlman HMT, Rode J, König J, et al. Probiotic Mixture Containing Lactobacillus helveticus, Bifidobacterium longum and Lactiplantibacillus plantarum Affects Brain Responses to an Arithmetic Stress Task in Healthy Subjects: A Randomised Clinical Trial and Proof-of-Concept Study. Nutrients. 2022;14(7):1329.
  38. An E, Delgadillo DR, Yang J, et al. Stress-resilience impacts psychological wellbeing as evidenced by brain–gut microbiome interactions. Nature Mental Health. 2024;2:935–950.
  39. Mysonhimer AR, Cannavale CN, Bailey MA, Khan NA, Holscher HD. Prebiotic Consumption Alters Microbiota but Not Biological Markers of Stress and Inflammation or Mental Health Symptoms in Healthy Adults: A Randomized, Controlled, Crossover Trial. The Journal of Nutrition. 2023;153(4):1283–1296.

肥胖與代謝失衡原因解析:壓力荷爾蒙、腸道菌與內分泌三大關鍵

0

肥胖或減重失敗,常被歸咎於「吃太多」或「意志力不足」,但代謝醫學指向一個更根本的事實:肥胖是一種涉及神經內分泌、胰島素訊號、腸道菌相與慢性發炎的系統性失衡,而非只是熱量超標的單一問題。

脂肪組織本身是人體最大的內分泌器官之一,它分泌的荷爾蒙訊號、加上腸道菌產生的代謝物,共同決定了一個人「是否容易胖」。

一、肥胖為什麼是「代謝問題」,而非單純的意志力問題?

要理解肥胖,第一步是重新認識脂肪組織。過去大眾普遍將脂肪視為單純的能量倉庫,但現代研究已將它重新定義為人體最大的內分泌器官之一:脂肪細胞會持續分泌超過五十種被稱為「脂肪激素」(adipokines)的化學訊號,參與調節血糖代謝、胰島素敏感性、血壓、免疫反應與食慾。

當內臟脂肪過度累積,這些訊號隨之失衡:有助提升胰島素敏感性的脂聯素(adiponectin)下降,同時大量促發炎細胞激素(如 TNF-α、IL-6)湧入血液循環,使脂肪組織進入「慢性低度發炎」狀態。這種長期發炎,正是連結後續所有代謝問題的共同背景。

因此,「怎麼吃、怎麼動」固然重要,但真正決定體態走向的,是四個互相牽動的核心環節:

  • 內分泌訊號:瘦素、胰島素、皮質醇、GLP-1等荷爾蒙如何調控食慾與脂肪分布。
  • 胰島素阻抗:細胞逐漸對胰島素訊號失去反應,身體被迫分泌更多胰島素的惡性循環。
  • 腸道菌相與腸腦軸:腸道微生物透過代謝物與大腦、代謝系統雙向溝通。
  • 慢性低度發炎:串連上述三者、並讓它們彼此惡化的共同因素。

二、代謝症候群:五項指標背後的整合性失衡

代謝症候群並非單一疾病,而是一組會顯著放大慢性病風險的危險因子集合。依國際糖尿病聯盟(IDF)於 2009年共同發布的整合標準,以及台灣衛生福利部國民健康署公布的判定指標:腹部肥胖(腰圍)、血壓偏高、空腹血糖偏高、三酸甘油酯偏高、高密度脂蛋白膽固醇過低等五項中,符合任三項,即達代謝症候群標準。

國民健康署的全國營養健康調查顯示,19歲以上成人的代謝症候群盛行率已達 34.6%,相當於每四位成人就有一人面臨此代謝危機。而具高危險指標者,後續罹患糖尿病、高血壓與心血管疾病的風險均呈倍數放大。

值得注意的是,BMI正常不代表沒有風險。因為BMI無法反映脂肪分布,若脂肪集中於腹部,即使體重落在正常範圍,內臟脂肪帶來的代謝風險依然不容忽視。

<延伸閱讀|健檢紅字年年有?從脂肪內分泌到腸道菌:解析代謝症候群的生理成因與逆轉機制>

三、脂肪組織是內分泌器官:身體為何會產生「瘦素阻抗」?

在眾多脂肪激素中,瘦素(leptin)最能說明肥胖的內分泌本質。瘦素由白色脂肪組織分泌,分泌量與脂肪儲備量成正比,其作用是向下視丘傳遞「能量庫存充足」的訊號,藉此抑制食慾。

研究發現,肥胖者的血清瘦素濃度顯著高於正常體重者,且與體脂率呈強正相關。也就是說,肥胖的困境不在於瘦素「不夠多」,而在於大腦已無法正常接收與回應此訊號,即為「瘦素阻抗(leptin resistance)」。其機轉與第二型糖尿病中的胰島素阻抗高度相似:荷爾蒙確實有分泌、濃度甚至偏高,但目標細胞的反應能力已大幅下降。瘦素阻抗涉及多層阻斷:

  1. 高三酸甘油酯血症:抑制瘦素通過血腦屏障的效率(周邊阻抗)
  2. 慢性高瘦素:使受體後訊號路徑去敏化(中樞阻抗)
  3. 下視丘的慢性發炎:進一步削弱神經元對訊號的反應

這解釋了為何許多人「明明飲食受控、體重卻難以下降」,相當程度上是生理性訊號被阻斷的結果,而非單純的意志力問題。

<延伸閱讀|瘦素愈高愈好嗎?解析「瘦素阻抗」與「皮質醇」的代謝惡性循環>

四、壓力荷爾蒙皮質醇:HPA軸如何把脂肪推向腹部

長期壓力是被低估的代謝阻力。當身體長期承受心理壓力或睡眠不足,下視丘—腦下垂體—腎上腺軸(HPA軸)會持續活化,使壓力荷爾蒙皮質醇(cortisol)分泌紊亂。

皮質醇對脂肪具有「部位選擇性」的影響。內臟脂肪與大網膜組織的糖皮質激素受體(GR)密度,遠高於四肢皮下脂肪。使腹部脂肪長期處於「局部高皮質醇濃度」的環境中,不斷被誘導儲存脂質,是壓力型肥胖者常呈現「四肢纖細、腹部隆起」的原因。

慢性壓力也會破壞皮質醇原有的晝夜節律。正常的皮質醇應「早高晚低」,但長期活化後會出現「扁平化」:清晨峰值降低、夜間本應下降卻異常偏高。身體長時間曝露在偏高的皮質醇環境中,會同時惡化血糖失調、腹部脂肪堆積與全身發炎。

<延伸閱讀|壓力型肥胖怎麼減?皮質醇(壓力賀爾蒙)失調與腸道菌相失衡對代謝的影響>

<延伸閱讀|健檢紅字年年有?從脂肪內分泌到腸道菌:解析代謝症候群的生理成因與逆轉機制>

五、胰島素阻抗與慢性低度發炎:連結一切的核心

貫穿代謝症候群、瘦素阻抗與壓力型肥胖的共同機制,就是胰島素阻抗與慢性低度發炎的相互強化。

胰島素負責將血液中的葡萄糖引導入肌肉、脂肪與肝臟細胞。當細胞逐漸不再對此訊號產生適當反應,血糖調控便會出現問題,身體被迫分泌更多胰島素來補償,形成阻抗更增加的惡性循環。而推動這個循環的關鍵之一,是一條從腸道出發的發炎路徑:

  • 腸漏與內毒素:高脂飲食與慢性壓力會損害腸道屏障,使腸道通透性增加(腸漏症)。
  • 代謝性內毒素血症:屏障失守後,革蘭氏陰性菌釋放的脂多醣(LPS)滲入血液循環。
  • 干擾訊號傳導:LPS活化免疫細胞、引發全身性慢性低度發炎,大量促發炎細胞激素干擾胰島素與瘦素的訊號傳導,並促進肝臟脂肪堆積。

換句話說,瘦素阻抗、胰島素阻抗、腸道菌相失衡與發炎,四者除了互相影響外,也會加重強化。

因此近年的代謝研究逐漸從「壓制食慾、努力減重」轉向「控制慢性發炎、修復訊號敏感度」,當發炎與訊號問題未解決,單靠熱量赤字往往難以持久維持健康的代謝力。

六、腸道菌相與腸腦軸:調節人體天然代謝力的關鍵!

既然發炎的源頭之一在腸道,腸道菌相自然成為調控整個代謝系統的關鍵。腸道內共生著數以兆計的微生物,不只協助消化,更直接參與能量吸收、食慾訊號調控與全身發炎反應。

其中最重要的媒介,是腸道菌發酵膳食纖維後產生的短鏈脂肪酸(SCFAs)。這類代謝物是連結「吃進什麼」與「身體如何反應」的橋樑,透過多重路徑同時調節代謝:

  • 調節血糖與食慾:刺激腸道細胞分泌 GLP-1 與 PYY 等腸泌素,延緩胃排空、提升胰島素敏感度,並向大腦傳遞飽足訊號。
  • 穩定壓力與情緒:丁酸能透過迷走神經降低下視丘的壓力敏感度,緩解HPA軸的過度反應。
  • 強化腸道屏障:維持腸壁完整性,減少LPS滲漏,從源頭抑制發炎。

此外,腸道菌相的比例(如擬桿菌門與厚壁菌門的相對豐富度)也影響身體從食物中吸收熱量的效率。研究發現,具產丁酸能力的菌株在代謝症候群患者中通常顯著減少,代表著維持豐富、多樣的腸道菌相,是修復代謝力的共同基礎。

GLP-1:飽足感荷爾蒙與內源性減重機制

GLP-1(升糖素類似胜肽-1)是近年減重話題的核心。它是由腸道L細胞分泌的一種天然腸泌素荷爾蒙,其核心作用包括:

  • 飯後刺激胰島素分泌:穩定血糖(且因具葡萄糖依賴性,較不易引發低血糖)
  • 延緩胃排空:作用於大腦飽食中樞以抑制食慾。

GLP-1透過大腦、腸道、胰臟三處同時作用,是最具系統性影響力的飽足感荷爾蒙之一。人體本身就會製造GLP-1,但內源性GLP-1的半衰期不到1.5分鐘,就會被DPP-4酵素迅速分解,因此身體需要持續的飲食刺激(尤其膳食纖維與蛋白質)才能維持穩定分泌。

GLP-1分泌能力的高低,很大程度取決於腸道菌相:SCFAs、特定菌種(如Akkermansia muciniphila、Lactobacillus reuteri)與次級膽汁酸訊號,都被研究證實能促進腸道L細胞分泌GLP-1。動物研究甚至發現,腸道菌群被清除後,餐後的GLP-1反應幾乎完全消失。

因此,強化天然GLP-1的分泌,是藥物之外重要的改變方向。具體可透過提高膳食纖維攝取、調整進食順序(蔬菜與蛋白質先、澱粉後)、增加蛋白質比例,以及採取地中海飲食搭配益生菌等方式達成。

<延伸閱讀|GLP-1 減重機制揭秘:不打針也能瘦?關鍵在於調節「腸道菌相」>

七、GLP-1 RA(瘦瘦針):藥物介入的效益、停藥復胖與代謝代償

「瘦瘦針」是GLP-1受體促效劑(GLP-1 RA)的通俗稱呼,透過皮下注射提供濃度更高、作用更長的人造荷爾蒙類似物。臨床上確實顯示出顯著的減重效益:

  • 以Semaglutide為例:三期臨床試驗中受試者68週平均減重約17.3%
  • 以Tirzepatide(GLP-1/GIP雙受體)為例:真實世界觀察甚至達約22.1%

然而,停藥後的體重反彈是臨床上極常見的挑戰。STEP 1延伸試驗顯示,停藥約一年後平均減重成果從17.3%回縮至5.6%,約三分之二消失;2026年發表於《eClinicalMedicine》的統合回歸分析則估計,停藥後最大復胖比例約達75.3%,且於停藥後的初期回升最快。

這類停藥復胖,並非單純的飲食失控,而是身體精密的代謝代償機制在運作:

  • 基礎代謝率下降:快速減重若伴隨肌肉(去脂體重)流失,靜止代謝率會顯著下降,身體進入「節能模式」。研究估計,瘦瘦針造成的瘦體組織流失約佔總減重的25–30%。
  • 腸腦軸荷爾蒙反撲:停藥後下視丘不再接收飽足訊號,飢餓素(ghrelin)上升、瘦素下降,引發異常強烈的飢餓感,這種代償狀態甚至可持續超過一年。

然而,停藥也不必然會全面復胖,真實世界中仍有超過半數患者能維持體重,差別在於用藥期間是否成功轉換了生活型態,並養成良好的腸道菌相。因此建議在停藥前就啟動三大關鍵機制:

  • 透過蛋白質與阻力訓練守住肌肉量
  • 透過膳食纖維與益生菌強化腸道菌相以喚醒天然 GLP-1
  • 提高非運動性熱量消耗(NEAT)

<延伸閱讀|GLP-1 減重機制揭秘:不打針也能瘦?關鍵在於調節「腸道菌相」>

<延伸閱讀|打瘦瘦針一定會復胖嗎?解析停藥前必須啟動的生理代謝機制!>

八、整合性代謝管理:從飲食、腸道到生活型態的系統策略

應對肥胖與代謝失衡的策略核心,不在於對抗單一數字,而在於降低代謝壓力、修復腸道屏障、恢復內分泌訊號敏感度與調整腸道菌相。以下為整體系統性調節的實證方向:

  1. 飲食結構:地中海飲食型態在改善代謝症候群多項指標上獲得較完整的研究支持。另外搭配高膳食纖維(含益生元,如菊糖、果寡糖、抗性澱粉)為腸道菌提供發酵基質、提高蛋白質比例(熱量限制期間建議每公斤體重 1.2 g 以上),並調整進食順序(以蔬菜與蛋白質先於澱粉)。
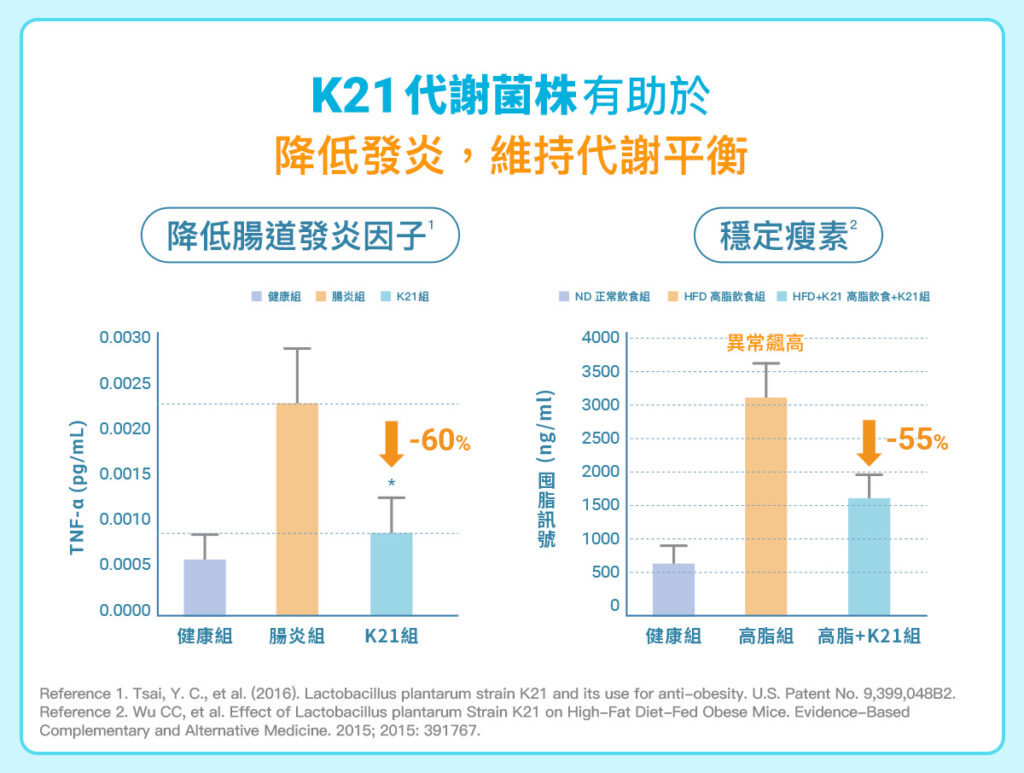
  2. 腸道菌相調節:腸道菌相是調控整個代謝系統的關鍵。除飲食外,補充具科學實證的代謝益生菌是重要的選項。以植物乳桿菌K21(Lactobacillus plantarum K21)為例,在高脂飲食動物模型中的代謝相關證據顯示:在為期八週的肥胖小鼠研究中,補充K21的組別在體重增幅、附睪脂肪堆積、血漿瘦素、膽固醇與三酸甘油酯等指標上均較高脂對照組改善。同時,腸道乳桿菌屬與雙歧桿菌屬增加、潛在有害菌減少,腸道屏障完整性獲得強化。
  3. 適度有氧運動與阻力訓練:適度的肌肉量是維持基礎代謝的核心。日常以非運動性熱量消耗(NEAT,如站立、步行、爬樓梯)累積能量支出,針對壓力型肥胖,宜採低強度恆態運動,避免高強度運動進一步提升皮質醇。
  4. 睡眠與晝夜節律調整:睡眠不足會使瘦素下降、飢餓素上升,並干擾皮質醇節律。規律作息、每日早晨接受約20分鐘日照以重置生理時鐘,有助於穩定HPA軸與壓力反應。
  5. 壓力調節:正念冥想、腹式呼吸等能提升迷走神經張力與副交感神經活性,透過腸腦軸下達「抗發炎」訊號,從源頭降低HPA軸的敏感度。

肥胖與代謝失衡,不只是意志力問題,更是脂肪組織、內分泌訊號、腸道菌相與免疫系統之間長期失衡的結果。當理解瘦素與胰島素阻抗、皮質醇失調與腸道發炎如何互相強化,就能明白改善代謝是身體循序修復的過程。

與其對抗脂肪或追求極端減重,最重要的是回到源頭:讓慢性發炎平息、腸道屏障穩固、身體重新對荷爾蒙的做出正確的反應,才能真正找回健康的節奏。

<延伸閱讀|K21菌株:抗發炎與代謝的突破性益生菌>

參考資料

  1. Alberti, K. G. M. M., et al. (2009). Harmonizing the metabolic syndrome: A joint interim statement. Circulation, 120(16), 1640–1645.
  2. Mottillo, S., et al. (2010). The metabolic syndrome and cardiovascular risk: A systematic review and meta-analysis. Journal of the American College of Cardiology, 56(14), 1113–1132.
  3. 衛生福利部國民健康署(2022)民國106–109年國民營養健康狀況變遷調查。
  4. Ramalho, R., et al. (2024). Adipokines in the crosstalk between adipose tissues and other organs. Biomedicines, 12(9), 2129.
  5. Ruiz-Ojeda, F. J., et al. (2022). The roles and associated mechanisms of adipokines in development of metabolic syndrome. Molecules, 27(2), 334.
  6. Considine, R. V., et al. (1996). Serum immunoreactive-leptin concentrations in normal-weight and obese humans. New England Journal of Medicine, 334(5), 292–295.
  7. Zhang, Y., et al. (1994). Positional cloning of the mouse obese gene and its human homologue. Nature, 372, 425–432.
  8. Flier, J. S., & Maratos-Flier, E. (2024). Leptin physiology and pathophysiology: Knowns and unknowns 30 years after its discovery. Journal of Clinical Investigation, 134(2), e174595.
  9. Morton, G. J., et al. (2010). Hyperleptinemia is required for the development of leptin resistance. PLoS ONE, 5(6), e11376.
  10. Banks, W. A., et al. (2004). Triglycerides induce leptin resistance at the blood-brain barrier. Diabetes, 53(5), 1253–1260.
  11. Wilding, J. P. H. (2019). Leptin resistance: Underlying mechanisms and diagnosis. Diabetes, Metabolic Syndrome and Obesity, 12, 1737–1745.
  12. Kyrou, I., Chrousos, G. P., & Tsigos, C. (2006). Stress, visceral obesity, and metabolic complications. Annals of the New York Academy of Sciences, 1083, 77–110.
  13. Jeong, I. K. (2012). The role of cortisol in the pathogenesis of the metabolic syndrome. Diabetes & Metabolism Journal, 36(3), 207–210.
  14. Tomlinson, J. W., et al. (2004). 11beta-hydroxysteroid dehydrogenase type 1: A tissue-specific regulator of glucocorticoid response. Endocrine Reviews, 25(5), 831–866.
  15. Kuckuck, S., van Baak, M. A., & Camps, S. G. J. A. (2023). Glucocorticoids, stress and eating: The mediating role of appetite-regulating hormones. Obesity Reviews, 24(3), e13539.
  16. Chaput, J. P., et al. (2023). The role of insufficient sleep and circadian misalignment in obesity. Nature Reviews Endocrinology, 19(2), 82–97.
  17. Li, M., et al. (2021). Sleep duration and the risk of metabolic syndrome in adults: A systematic review and meta-analysis. Frontiers in Endocrinology.
  18. Cani, P. D., & Delzenne, N. M. (2009). The role of the gut microbiota in energy metabolism and metabolic disease. Current Pharmaceutical Design, 15(13), 1546–1558.
  19. Byrne, C. S., et al. (2015). The role of short chain fatty acids in appetite regulation and energy homeostasis. International Journal of Obesity, 39(9), 1331–1338.
  20. Facchin, S., et al. (2024). Short-chain fatty acids and human health. Life (Basel), 14(5), 559.
  21. Camilleri, M., et al. (2023). Gut microbiota, intestinal permeability, and systemic inflammation: A narrative review. Internal and Emergency Medicine.
  22. Barakat, G., et al. (2024). Satiety: A gut–brain–relationship. Journal of Physiological Sciences, 74, 10.
  23. Moiz, A., et al. (2025). Mechanisms of GLP-1 receptor agonist-induced weight loss. The American Journal of Medicine.
  24. Tolhurst, G., et al. (2012). Short-chain fatty acids stimulate glucagon-like peptide-1 secretion via the G-protein–coupled receptor FFAR2. Diabetes, 61(2), 364–371.
  25. Simon, M. C., et al. (2015). Intake of Lactobacillus reuteri improves incretin and insulin secretion in glucose-tolerant humans. Diabetes Care, 38(10), 1827–1834.
  26. Xie, C., et al. (2023). Gut microbiota regulates postprandial GLP-1 response via ileal bile acid–TGR5 signaling. Gut Microbes, 15(2), 2274124.
  27. Li, H., et al. (2024). Resistant starch intake facilitates weight loss in humans by reshaping the gut microbiota. Nature Metabolism, 6(3), 578–597.
  28. Wilding, J. P. H., et al. (2022). Weight regain and cardiometabolic effects after withdrawal of semaglutide: The STEP 1 trial extension. Diabetes, Obesity and Metabolism, 24(8), 1553–1564.
  29. Aronne, L. J., et al. (2024). Continued treatment with tirzepatide for maintenance of weight reduction: The SURMOUNT-4 randomized clinical trial. JAMA, 331(1), 38–48.
  30. Lv, H., et al. (2026). Trajectory of weight regain after cessation of GLP-1 receptor agonists: A systematic review and nonlinear meta-regression. eClinicalMedicine.
  31. Sumithran, P., et al. (2011). Long-term persistence of hormonal adaptations to weight loss. New England Journal of Medicine, 365(17), 1597–1604.
  32. Karakasis, P., et al. (2025). Effect of glucagon-like peptide-1 receptor agonists and co-agonists on body composition: Systematic review and network meta-analysis. Metabolism, 164, 156113.
  33. Levine, J. A. (2015). Nonexercise activity thermogenesis in obesity management. Mayo Clinic Proceedings, 90(4), 509–519.
  34. Giacco, A., Cioffi, F., & Silvestri, E. (2025). Mediterranean diet and metabolic syndrome. Nutrients, 17(14), 2364.
  35. Shukla, A. P., et al. (2020). A review of recent findings on meal sequence: An attractive dietary approach to prevention and management of type 2 diabetes. Nutrients, 12(8), 2467.
  36. Chan, C. W. H., et al. (2023). Effects of synbiotic supplementation on metabolic syndrome traits and gut microbial profile among overweight and obese individuals: A randomized trial. Nutrients, 15(19), 4210.
  37. Wu, C. C., Weng, W. L., Lai, W. L., Tsai, H. P., Liu, W. H., Lee, M. H., & Tsai, Y. C. (2015). Effect of Lactobacillus plantarum strain K21 on high-fat diet-fed obese mice. Evidence-Based Complementary and Alternative Medicine, 2015, 391767.

失眠怎麼辦?睡眠科學、失眠類型與根本改善策略完整指南

0

「失眠」是指在有足夠睡眠機會的情況下,仍出現入睡困難、睡眠無法維持或過早清醒,並影響日間身體功能的睡眠障礙。它不只是「睡不夠」,更常是大腦的「清醒-睡眠」系統失衡的結果。本文彙整睡眠的基礎科學、失眠的類型與成因,並依不同族群與改善策略提供方案。

一、失眠的類型有哪些?

現代社會的睡眠問題已相當普遍,成年人中亦常見慢性失眠,且常伴隨壓力、荷爾蒙失調等因素。

睡眠的重要性不只在於休息。研究指出,大腦的「膠淋巴系統(Glymphatic System)」主要在深層睡眠時啟動,負責清除包括與阿茲海默症相關的β類澱粉蛋白與Tau蛋白等代謝廢物。長期睡眠不足或睡眠變淺,可能使廢物清除效率下降,並與慢性發炎、神經退化風險相關。

失眠可以從「睡眠表現(症狀)」與「生理機制(成因)」兩個層面來分類:

1. 從「睡眠表現」分類

是臨床上最直觀的分類方式,主要觀察失眠發生在睡眠的哪個階段:

  • 入睡困難型(Sleep Onset Insomnia):
    • 特徵:上床後躺超過30分鐘仍無法入睡,主觀感覺是「腦袋停不下來」、思緒不斷運轉。
    • 核心原因:清醒系統過強,大腦無法順利從清醒切換到睡眠模式。
  • 維持困難型(Sleep Maintenance Insomnia):
    • 特徵:夜間反覆驚醒(醒來次數通常超過3次),且醒後難以再次入眠,導致睡眠被切得很碎片化。
    • 核心原因:常與快速動眼期(REM)睡眠生成失敗或被頻繁切斷有關。
  • 早醒型(Early-Morning Insomnia):
    • 特徵:清晨過早醒來,且清醒後壓力感明顯,無法再睡回去。
    • 核心原因:壓力系統(HPA軸)過早啟動,導致壓力荷爾蒙「皮質醇」提前分泌。
  • 睡眠效率差型(Sleep Efficiency Insomnia):
    • 特徵:睡眠時間看似足夠,但醒來後仍感到身體疲倦、大腦昏沈、肌肉僵硬。
    • 核心原因:深層睡眠階段比例不足,導致大腦與身體未獲得實質修復。

2. 從「生理與心理機制」分類

這類分類有助於理解失眠為何形成並持續存在:

  • 生理覺醒模型:核心在於清醒系統(如食慾素、正腎上腺素)過度活躍,即使身體疲憊,大腦仍難以「關機」。
  • 認知/行為模型:個體因為擔心睡不好而產生焦慮(預期性焦慮),過度關注睡眠時間反而進一步活化清醒系統,形成惡性循環。
  • 更年期失眠:特別發生在女性,由雌激素與黃體素劇降引起生理節律紊亂,常伴隨熱潮紅、夜汗等生理不適進而干擾睡眠。

二、認識正常睡眠:睡眠週期與大腦的睡眠調控

睡眠並非單一狀態,而是一連串規律循環的「睡眠週期」。現行美國睡眠醫學會(AASM)分期包含清醒(Wake)、非快速動眼期(NREM)的N1、N2、N3,以及快速動眼期(REM)。一般成人一晚約經歷4至6個週期,每個週期約80至110分鐘。

  • N1(入睡過渡期):從清醒跨入睡眠的過渡,仍容易被喚醒。
  • N2(穩定淺睡期):代表正式睡著,佔整晚睡眠約一半以上。
  • N3(深層慢波睡眠):最深層、最難喚醒的階段,多集中在前半夜,與組織修復、生長激素分泌、免疫調節與記憶表現有關。
  • REM(快速動眼期):大腦活動接近清醒、夢境密集,多集中在後半夜,與情緒調節與記憶處理有關。

值得注意的是,睡眠品質不只看「睡多久」,也看睡眠是否被切碎、作息是否規律,以及睡眠節奏是否與生理時鐘同步。若深睡不足,即使時間足夠,仍可能發生「有睡像沒睡」的疲勞感。

睡眠與清醒的切換,主要受兩大機制交互作用:

  • 恆定性睡眠驅力(Sleep homeostasis):清醒越久,睡眠壓力越高。
  • 晝夜節律(Circadian rhythm):由體內生理時鐘決定何時該清醒、何時該入睡。

若睡眠壓力足夠、但作息與生理時鐘錯開,仍可能出現「很累卻睡不著」的狀況。在神經層面,維持清醒的物質包含正腎上腺素、組織胺、食慾素(Orexin)、多巴胺與麩胺酸等;而 GABA(γ-胺基丁酸)是最重要的抑制性神經傳導物質之一,在睡眠啟動與維持中扮演關鍵角色;血清素則參與睡眠調節與情緒平衡。因此,失眠原因可以是睡眠週期架構被打亂、或上述神經傳導物質的節律與強度失衡。

<延伸閱讀|睡不好還是睡錯?一次搞懂睡眠週期、失眠類型與助眠關鍵>

三、壓力型失眠:越累越清醒的惡性循環

壓力型失眠是指因心理壓力、焦慮或突發生活事件引起的睡眠障礙,核心機制為大腦警覺系統無法在夜間下降(過度警覺理論,Hyperarousal Theory)。

其關鍵在於HPA軸(下視丘-腦垂體-腎上腺軸)與皮質醇。正常狀態下,皮質醇應在早晨達高峰以喚醒身體,夜間降至最低以利入睡;但長期高壓會使HPA 軸過度活躍,皮質醇在夜間無法正常下降,抑制褪黑激素生成並維持交感神經亢奮,形成「越累越清醒」的困境。

壓力型失眠最大的困擾是「睡眠片段化(Sleep Fragmentation)」。睡眠因被切碎,難以進入慢波深睡與REM,導致睡眠效率(Sleep Efficiency, SE,實際入睡時間/躺床總時間)下降。即使總睡眠時數足夠,醒來仍感覺昏沉,且常伴隨情緒調節能力下降。

此外,慢性高皮質醇濃度也會改變腸道菌叢、削弱腸道屏障(引發腸漏現象),使細菌內毒素滲入血液引發全身性發炎,發炎因子再干擾睡眠中樞與血清素合成,形成難以打破的惡性循環。

<延伸閱讀|壓力型失眠與腸道菌失衡:2026 深度指南,越累越清醒?精神益生菌改善機制全解析>

四、更年期失眠:荷爾蒙、壓力與睡眠的交互作用

更年期多發生於45至55歲之間,是女性必經的自然生理階段。綜述與統合分析顯示,更年期與停經後女性的睡眠困擾比例大約落在35-60%。

更年期失眠通常不是單一原因,主要有兩大因素:

  • 荷爾蒙變化:協助放鬆與入睡的雌激素與黃體素逐漸下降,使睡眠節律不穩,並帶來熱潮紅、夜汗、夜間頻尿等干擾。
  • 心理壓力:身體改變、老化焦慮、角色與職涯轉換等,使皮質醇升高,進一步干擾睡眠中樞,容易在清晨出現「黎明焦慮」。

近年研究也認為,雌激素下降與腸道菌相之間可能存在雙向關係。更年期後腸道微生物的組成、代謝與多樣性可能改變,進而影響發炎反應與整體代謝。因此,從改善腸道環境切入,被視為支持睡眠穩定與壓力調節的輔助策略之一。

<延伸閱讀|女性職場壓力、更年期失眠問題:從高警戒模式到菌腦腸軸,一次看懂更年期睡不好的真正原因>

五、失眠的改善策略:從藥物到根本調節

藥物治療的角色與限制

臨床常見安眠藥多屬鎮靜催眠藥,如苯二氮平類(Benzodiazepines)與Z-drugs(如zolpidem),主要透過增強GABA受體來鎮靜。這類藥物屬處方藥,在醫師評估下對急性、短期失眠有其幫助,但需留意其作用為「強制鎮靜」,無法幫助恢復自然睡眠結構。且可能出現嗜睡、頭暈、記憶減退等副作用,以及長期使用可能產生的耐受性、依賴性與反彈性失眠。

此外,部分研究觀察到長期使用(特別是苯二氮平類)與失智風險上升的關聯,機制之一可能與深睡期大腦廢物清除受干擾有關。

非藥物策略:認知行為治療與生活型態

  • 失眠認知行為治療(CBT-I):包含睡眠衛生教育、刺激控制、睡眠限制、放鬆訓練與認知療法,是慢性失眠的第一線非藥物選擇。
  • 生活型態調整:規律作息、白天運動、睡前放鬆與冥想、睡前減少藍光刺激,並避免午後咖啡因、酒精與尼古丁。
  • 環境調整:降低睡眠環境溫度,對更年期熱潮紅族群尤其重要。

<延伸閱讀|睡不好只能靠安眠藥?精神益生菌的作用機制、菌株研究與臨床優勢>

菌腸腦軸與精神益生菌:從根本調節睡眠的新方向

腸道被稱為「第二大腦」,透過神經、免疫、內分泌與微生物代謝物等路徑,與大腦持續雙向溝通,此即「菌腸腦軸(Gut-Brain Axis)」。2025年一項納入15項失眠個案對照研究的系統性回顧發現,失眠族群常見腸道菌多樣性降低,且部分與短鏈脂肪酸生成相關的菌群較少見。因此,腸道菌相失衡可能與睡眠品質下降、壓力調節失衡相關。

精神益生菌(Psychobiotics)一詞,早在2013年由Dinan等學者提出,定義為「在足量攝取後,能對精神健康帶來正向影響的活性微生物」。

精神益生菌與一般益生菌的差異在於「菌株(Strain)」層級的特定功效。同一菌種可能有數千種菌株,「菌株編號」如同身分證,不同菌株功效差異極大。

精神益生菌可能透過四種路徑影響睡眠:

  • 神經內分泌(調節血清素、GABA)
  • 免疫與發炎
  • 壓力反應(調節HPA軸與皮質醇)
  • 代謝活性物質(短鏈脂肪酸、色胺酸等代謝物)

與傳統安眠藥相比,這類非藥物的天然調節方式,被認為更溫和,也更適合作為長期維持睡眠健康的方法。下表呈現安眠藥與精神益生菌的作用差異:

比較項目安眠藥精神益生菌
主要路徑直接作用於大腦GABA受體透過「菌腸腦軸」多路徑調節
作用機制強制鎮靜、減少神經活動生理調節、降低皮質醇、優化結構
睡眠品質睡著但結構不完整,難深層修復找回自然節律,增加深層睡眠
壓力調節僅掩蓋症狀,未調節壓力系統抑制HPA軸過度活化,緩解焦慮
長期風險具依賴性、耐受性與失智風險無依賴性,具腸道與神經保健效益
副作用白天昏沉、記憶力受損、夢遊無傳統藥物副作用,醒後神清氣爽

六、兩大實證助眠菌株:PS128 和 PS150 適合哪些族群?

植物乳桿菌PS128與發酵乳桿菌PS150雖然都屬於精神益生菌,但其作用機制不同,分別針對不同的失眠成因與族群:

1. 植物乳桿菌 PS128:壓力釋放型

PS128主要專注於「情緒調節」與「降低壓力」,適合以下族群:

  • 高壓上班族:尤其是IT工程師、主管職等需要高度用腦的人士。
  • 「腦袋停不下來」者:躺在床上時思緒混亂、反芻思考,導致入睡困難(過度警覺模型)的族群。
  • 長期焦慮或憂鬱傾向者:PS128能顯著降低體內的皮質醇(壓力荷爾蒙),並調節多巴胺與血清素代謝,幫助身心放鬆。
  • 希望改善整體睡眠品質的人:研究顯示其能減少深度睡眠期間的覺醒次數,提升睡眠效率。

2. 發酵乳桿菌 PS150:節律修復型

PS150著重於「生理時鐘校正」與「增加深層睡眠」,適合以下族群:

  • 生理時鐘紊亂者:如輪班工作者、時差困擾者,或生活作息不規律導致入睡困難的人。
  • 「早醒型」或「黎明焦慮」族群:經常在凌晨4、5點自動驚醒,且醒後壓力感沉重、難以回睡的高壓族群。
  • 更年期女性:針對因荷爾蒙波動引起的入睡困難、半夜易醒及清晨早醒,PS150能協助校正生理時鐘並緩解焦慮。
  • 淺眠、睡不深者:希望延長深層睡眠(NREM)時間,且不希望像傳統安眠藥壓縮快速動眼期階段(REM,影響記憶整合)的人。
精神益生菌菌株核心對應症狀推薦適用族群
植物乳桿菌PS128焦慮、思慮過多、壓力大、腦袋轉不停高壓專業人士、IT 工程師、管理階層
發酵乳桿菌PS150淺眠、易醒、早醒、生理時鐘亂、黎明焦慮更年期女性、輪班族、淺眠者、中度失眠者

<延伸閱讀|心情不好、睡不著?認識「精神益生菌」與腸腦軸:PS128 與 PS150 如何調節情緒壓力>

<延伸閱讀|精神益生菌 PS150:以「菌腦腸軸」重建「睡眠」的天然解方>

2025 年發表於《BMC Psychiatry》的大型系統性回顧與統合分析,彙整了 72 項隨機對照試驗、逾 6,000 名受試者,結果顯示益生菌可顯著改善憂鬱、焦慮與睡眠品質,顯示出跨越不同族群與菌株後仍一致呈現的研究結果趨勢。

相較於藥物直接鎮靜,精神益生菌的作用更偏向長期、系統性的調節。不只讓人「睡著」,而是從壓力、情緒與睡眠節律整體著手,協助身體逐步找回穩定的睡眠。腸道菌相的改變平均需4至8週,應搭配充足膳食纖維(益生元)並維持規律補充,同時結合生活習慣調整,獲得更健康的睡眠!

參考資料

  1. Jawabri, K. H., & Raja, A. (2025). Physiology, sleep patterns. In StatPearls. StatPearls Publishing.
  2. Oh, J., et al. (2019). The role of co-neurotransmitters in sleep and wake regulation. Molecular Psychiatry, 24(9), 1284–1295.
  3. Assefa, S. Z., et al. (2015). The functions of sleep. Neuroscience, 2, 155–171.
  4. Perlis, M., et al. (2011). Models of insomnia. Principles and Practice of Sleep Medicine, 5(1), 850–865.
  5. Xie, L., et al. (2013). Sleep drives metabolite clearance from the adult brain. Science, 342(6156), 373–377.
  6. Riemann, D., et al. (2020). The hyperarousal model of insomnia: A review of the concept and its evidence. Sleep Medicine Reviews, 52, 101303.
  7. Leistner C, Menke A. Hypothalamic-pituitary-adrenal axis and stress. Handb Clin Neurol. 2020;175:55-64.
  8. De Nys L, Anderson K, Ofosu EF, Ryde GC, Connelly J, Whittaker AC. The effects of physical activity on cortisol and sleep: A systematic review and meta-analysis. Psychoneuroendocrinology. 2022 Sep;143:105843.
  9. Leerssen, J., et al. (2020). The fragmented sleep of insomnia: A systematic review and meta-analysis of sleep architecture. Sleep Medicine Reviews, 54.
  10. Wassing R, Lakbila-Kamal O, Ramautar JR, Stoffers D, Schalkwijk F, Van Someren EJW. Restless REM Sleep Impedes Overnight Amygdala Adaptation. Curr Biol. 2019 Jul 22;29(14):2351-2358.e4.
  11. Mayer, E. A., et al. (2022). The microbiome–gut–brain axis in health and disease. Nature Reviews Gastroenterology & Hepatology, 19(1).
  12. Cryan, J. F., et al. (2019). The microbiota–gut–brain axis. Physiological Reviews, 99(4), 1877–2013.
  13. O’Mahony, S. M., et al. (2021). Serotonin, tryptophan metabolism and the microbiota–gut–brain axis. Behavioural Brain Research, 411.
  14. Wang, Y., et al. (2025). The role of gut microbiota in insomnia: A systematic review of case–control studies. Life, 15(7), 1086.
  15. Misra, S., & Mohanty, D. (2019). Psychobiotics: A new approach for treating mental illness? Critical Reviews in Food Science and Nutrition, 59(8), 1230–1236.
  16. Zhang, J., et al. (2025). The efficacy of probiotics, prebiotics, and synbiotics on anxiety, depression, and sleep: A systematic review and meta-analysis of randomized controlled trials. BMC Psychiatry.
  17. Ho, Y.-T., et al. (2021). Effects of Lactobacillus plantarum PS128 on depressive symptoms and sleep quality in self-reported insomniacs: A randomized, double-blind, placebo-controlled pilot trial. Nutrients, 13(8), 2820.
  18. Wu, S.-I., et al. (2021). Psychobiotic supplementation of PS128 improves stress, anxiety, and insomnia in highly stressed information technology specialists: A pilot study. Frontiers in Nutrition, 8, 614105.
  19. Lin, A., et al. (2021). Lactobacillus fermentum PS150 promotes non-rapid eye movement sleep in the first night effect of mice. Scientific Reports, 11(1), 16313.
  20. Lee, M.-C., et al. (2025). Heat-treated Limosilactobacillus fermentum PS150 improves sleep quality with severity-dependent benefits: A randomized, placebo-controlled trial. Nutrients.
  21. Sikorska M, Antosik-Wójcińska AZ, Dominiak M. Probiotics as a Tool for Regulating Molecular Mechanisms in Depression: A Systematic Review and Meta-Analysis of Randomized Clinical Trials. Int J Mol Sci. 2023 Feb 4;24(4):3081.
  22. Jeon, G. H. (2024). Insomnia in postmenopausal women: How to approach and treat it? Journal of Clinical Medicine, 13(2), 428.
  23. 台灣睡眠醫學學會(2022)。台灣失眠盛行率與睡眠健康調查報告。

反覆私密搔癢、異味找不到原因?認識陰道乳桿菌,重建女性私密菌叢防線

0

大部分女性都有過類似經驗:私密處反覆出現搔癢、分泌物變多、異味,或排尿時的刺痛與不適。就醫用藥後雖好轉,過一陣子卻又捲土重來。長期下來,不少人會懷疑自己屬於天生容易感染的體質。

近年微生物體(microbiome)的研究提供了另一種理解方式:這類問題未必單純是「抵抗力差」或「體質不好」,而多半與陰道微生態失衡(vaginal dysbiosis)有關。女性的陰道與泌尿環境並非單純「乾淨與否」,而是一個由多種微生物共同維持的微型生態系。其中以乳桿菌(Lactobacillus)為主的菌叢,對維持陰道酸鹼值、抑制病原菌生長及維護黏膜屏障具有重要作用,反覆感染往往是因菌叢生態的平衡被打亂。

因此,私密健康可以拆解成兩道彼此相連的防線:一是陰道本身的乳桿菌,二是與之關係密切的腸道菌叢。除了治療感染本身,更重要的是如何維持陰道與腸道菌叢平衡。

一、泌尿道感染、細菌性陰道炎和念珠菌感染有什麼不同?

「私密處感染」是一個較生活化的統稱,臨床上涵蓋了不同部位、由不同病原引起的數種不適狀況。廣義而言,大致可分為三類:泌尿系統的泌尿道感染(Urinary tract infection, UTI)、陰道菌叢失衡的細菌性陰道炎(Bacterial Vaginosis, BV),以及由酵母菌過度增殖有關的陰道念珠菌感染(Vulvovaginal candidiasis, VVC)。三者的症狀有時相似,成因與處理方式卻不盡相同。 下表整理常見私密處感染類型 (Huang 2023):

項目泌尿道感染(UTI)細菌性陰道炎(BV)念珠菌感染(VVC)
主要部位膀胱、尿道等泌尿系統陰道外陰與陰道
常見相關病原多為大腸桿菌等腸道細菌乳桿菌減少、以 Gardnerella為主的厭氧菌增生念珠菌過度增生,多為白色念珠菌
典型症狀排尿灼痛、頻尿、急尿、恥骨上方或下腹不適稀薄分泌物與異味、搔癢、刺激感通常較輕微明顯外陰搔癢與灼熱、泛紅
分泌物與排尿特徵多無明顯陰道分泌物變化,以排尿症狀為主均質、灰白色、偏稀白色濃稠、近似凝乳狀
近年文獻盛行率參考超過半數女性一生至少一次育齡女性全球約30%約達75%女性一生至少一次

從盛行率能看出,私密處感染在全球女性上相當普遍,並非少數人的特殊體質問題。以泌尿道感染為例,超過一半的女性一生中至少會經歷一次,且女性的發生率明顯高於男性。當反覆發作達一定次數,臨床上會以「復發性泌尿道感染」看待,常見定義為半年內兩次以上,或一年內三次以上。細菌性陰道炎與念珠菌感染亦不罕見,其中也有部分人會演變成反覆發作。

泌尿道感染(UTI)最常見致病菌比例

研究顯示(European Association of Urology Guidelines, 2025),約70%至90%的女性泌尿道感染是由大腸桿菌引起。由於腸道本身就是大腸桿菌的重要儲存庫,當陰道乳桿菌減少、私密微生態失衡時,腸道細菌更容易於會陰部與陰道周圍定殖,進而增加泌尿道感染風險。

其他較常見的致病菌包括:

致病菌約占比例
大腸桿菌(E. coli)70–90%
腐生葡萄球菌(Staphylococcus saprophyticus)5–15%
克雷伯氏菌(Klebsiella spp.)3–8%
變形桿菌(Proteus mirabilis)1–5%
腸球菌(Enterococcus spp.)1–5%

由於女性尿道較短,且尿道口與陰道、肛門位置接近,腸道中的細菌較容易進入。其中,大腸桿菌具有特殊的黏附因子(adhesins),能附著於泌尿道上皮細胞,因此特別容易引發感染。

細菌性陰道炎(BV)復發率與生物膜形成機制

細菌性陰道炎(Bacterial Vaginosis, BV)最大的臨床挑戰之一,就是復發率相當高。即使完成標準抗生素治療,許多患者仍會在數個月內再次出現症狀。近年的系統性回顧研究指出,患者於3個月內復發率約20-40%,一年內復發率可高達80%。

造成細菌性陰道炎容易復發的重要原因之一,是病原菌會形成生物膜(Biofilm)。生物膜可理解為細菌建立的「保護城牆」,當類似Gardnerella vaginalis等細菌附著於陰道上皮後,會分泌胞外聚合物(extracellular polymeric substances),形成一層緻密結構,把細菌包覆在內,造成以下高復發因素:

  • 降低抗生素滲透能力
  • 提高細菌存活率
  • 增加病原菌再次增殖機會
  • 抑制乳桿菌重新定殖

研究顯示,在BV患者的陰道表面,Gardnerella通常是生物膜的核心菌種,並會與Atopobium、Prevotella等其他厭氧菌共同形成複合菌群。即使抗生素能暫時降低游離細菌的數量,但殘留於生物膜中的細菌仍可能存活,待環境適合時再次大量增殖,導致感染反覆發生。

因此,近年私密健康研究逐漸從「單純殺菌」轉向「重建乳桿菌優勢菌相」的調節。除了清除病原菌,恢復陰道乳桿菌定殖能力,被認為是降低私密感染復發風險更加重要的策略。

二、私密健康的第一道防線:陰道乳桿菌

健康的陰道並不是無菌環境,而是一個由數十億微生物共同組成的生態系統。其中最重要的乳桿菌(Lactobacillus)通常占據優勢地位,不只是存在其中,而是主動將環境維持在不利於病原生長的狀態,因此被視為私密健康的第一道防線。研究顯示,當乳桿菌數量充足時,能維持陰道環境穩定,降低細菌性陰道炎、念珠菌感染及部分泌尿道感染的風險;反之,當乳桿菌減少,病原菌便更容易趁機增殖。

乳桿菌如何保護私密健康?

保護機制對私密健康的影響
產生乳酸、維持酸性維持陰道酸性環境,壓制多數病原增生
產生抗菌物質抑制有害菌定殖
競爭附著位置減少病原菌附著黏膜
調節局部免疫反應降低發炎風險
維持黏膜屏障完整性強化天然防禦能力

在不同機制中,維持酸性環境是核心。當菌相失衡、或感染細菌性陰道炎時,乳酸會被消耗,陰道pH值隨之上升(常超過4.5),環境也會轉為對厭氧菌等病原較有利。多種厭氧菌增生是細菌性陰道炎的菌相特徵,並與性傳播感染風險上升有關。

不同乳桿菌菌相的保護力,差異為何?

雖然陰道中的乳桿菌種類很多,但研究發現,健康女性陰道菌叢最常見且與私密健康關聯度最高的菌種,主要包括Lactobacillus crispatus(捲曲乳桿菌)、Lactobacillus gasseri(加氏乳桿菌)、Lactobacillus jensenii(詹氏乳酸菌)與Lactobacillus iners(惰性乳酸桿菌)。

不過,並非所有乳桿菌的保護能力都相同。目前的研究普遍認為,L. crispatus(捲曲乳桿菌)、L. gasseri(加氏乳桿菌)與L. jensenii(詹氏乳酸菌)通常與較穩定的陰道環境及較低的感染風險有關。

常見陰道乳桿菌比較

菌種特性與私密健康的關聯
Lactobacillus crispatus (捲曲乳桿菌)產乳酸能力強,能穩定維持低 pH值被認為是最具保護力的優勢菌種之一,與較低BV及UTI風險有關
Lactobacillus gasseri (加氏乳桿菌)能產生乳酸與部分抗菌物質有助抑制病原菌定殖,維持菌相穩定
Lactobacillus jensenii (詹氏乳酸菌)附著能力佳,可長期定殖陰道與健康陰道菌相及較低感染風險相關
Lactobacillus iners (惰性乳酸桿菌)適應力強,常見於菌相轉換期保護力可能較前述菌種弱,常見於健康與失衡狀態之間

三、腸道菌叢平衡,是維持私密健康的重要基礎

許多人認為私密處感染是陰道本身的問題,但近年的微生態研究發現,影響陰道健康的因素不只存在於私密處,腸道菌叢也扮演重要角色。雖然陰道乳桿菌是第一道防線,但與之關係最密切的「後盾」,其實在腸道。

事實上,生殖道的菌相會影響女性下一代的健康,而健康的陰道環境往往由一到兩種乳桿菌主導,腸道菌叢的狀態則會透過多種途徑與之相互影響。就解剖位置而言,腸道(尤其是直腸)與陰道、尿道距離相近,微生物會在這些部位之間移動,既可能讓有益的乳桿菌從腸道補充至陰道,也可能讓病原以腸道作為「儲備基地」,再侵入泌尿生殖道。

腸道是陰道乳桿菌的重要來源之一

研究發現,健康女性陰道中的部分乳桿菌菌種,例如 Lactobacillus crispatus、Lactobacillus gasseri、Lactobacillus jensenii 等,也能在腸道中被發現。目前認為,腸道可能是陰道乳桿菌的重要儲存庫(reservoir),使乳桿菌能經由相近的位置,逐步定殖於陰道,協助維持乳桿菌優勢菌相。當腸道中的乳桿菌數量下降,或腸道菌相失衡時,陰道重新建立健康菌叢的能力也可能受到影響。

健康的腸道菌叢,有助維持陰道天然防禦力

除了菌種本身的移動之外,腸道菌叢也會透過免疫系統影響陰道健康。腸道聚集了人體約70%的免疫細胞,菌叢組成會影響免疫訊號傳遞及發炎反應調節。

當腸道菌相失衡時,連帶可能對私密健康的潛在影響包括:

  • 慢性低度發炎增加:陰道屏障功能下降
  • 免疫調節能力失衡:病原菌較容易定殖
  • 腸道通透性增加:發炎訊號升高
  • 保護性代謝物減少:菌叢穩定性下降

四、私密保養的重點:從「殺菌」走向「菌相重建」

從菌叢的角度看,反覆發作的私密感染,並非「治不好」或體質太差。問題往往在於治標不治本,也就是「只清除、未重建」。

抗生素是目前治療細菌性陰道炎等感染的標準且有效方法,雖能消滅造成感染的病原菌,但好菌也同時被清除,療程結束後,有益乳桿菌群的優勢菌相沒有重新在陰道定殖,「菌叢失衡(dysbiosis)」才導致高復發率。

其次,病原菌形成的生物膜會阻礙抗生素穿透,使其不易被完全清除,並可能在無乳桿菌的環境下,更利於重新生長。

私密保養怎麼做?從飲食與生活習慣重建菌相平衡

重建私密處菌相平衡,核心在於維持陰道乳桿菌優勢、降低病原菌增生,以及維持弱酸性的陰道環境,建立穩定的菌相平衡。日常保養可從飲食、生活習慣及具有臨床研究支持的營養補充三個面向著手。

1. 透過飲食支持腸道與陰道菌相

均衡飲食有助於維持腸道菌叢多樣性,並透過「腸-陰道軸(Gut–Vagina Axis)」間接影響陰道菌相。

  • 增加膳食纖維與益生元攝取:全穀類、燕麥、豆類、蔬菜及水果富含膳食纖維與益生元,可作為腸道益菌的營養來源,有助維持菌相平衡。
  • 適量攝取天然發酵食品:如無糖優格、克菲爾、味噌或泡菜等,可增加飲食中的益生菌來源,但不同食品所含菌株及活菌數差異較大,無法取代具有臨床研究支持的益生菌產品。
  • 減少高糖及高精製飲食:長期攝取過多精製糖、含糖飲料及高熱量加工食品,可能影響腸道菌叢平衡,也可能增加念珠菌過度增生的風險。

2. 建立有助於維持菌相的生活習慣

除了飲食之外,日常生活習慣也是維持私密健康的重要因素。

  • 充足補充水分,不長時間憋尿:適量飲水有助於正常排尿,降低細菌在泌尿道停留的時間。一般成人每日建議飲水量約為1500-2000cc,依年齡、活動量及健康狀況調整。
  • 選擇透氣、吸濕的衣物:建議穿著棉質或透氣材質的內褲,避免私密處長時間處於悶熱潮濕的環境。
  • 避免過度清潔與陰道灌洗:健康陰道具有自我維持弱酸性環境的能力,頻繁使用刺激性清潔產品或陰道灌洗,反而可能破壞乳桿菌優勢菌相,增加菌叢失衡的風險。
  • 採用溫和清潔方式:日常以清水清潔外陰部通常即可;若使用私密清潔產品,建議選擇成分單純、低刺激性的產品,避免過度清潔。
  • 注意如廁後的擦拭方向:由前往後擦拭,可降低腸道細菌接觸陰道口及尿道口的機會。

私密益生菌怎麼吃?選對菌株 + 複方成分是關鍵

目前研究認為,私密益生菌的效果具有菌株專一性(strain specificity)。即使屬於相同菌種,不同菌株在定殖能力、作用機制及人體臨床證據上都可能存在差異,因此挑選產品時,應優先確認是否標示完整菌株名稱,而非僅標示「乳桿菌」或強調高菌數。

目前人體研究較完整的私密健康菌株包括Lacticaseibacillus rhamnosus GR-1與Limosilactobacillus reuteri RC-14。多項隨機對照試驗及近年的系統性回顧指出,兩者搭配使用可作為細菌性陰道炎(BV)治療後的輔助策略,有助於恢復陰道乳桿菌優勢菌相,並降低部分女性的復發風險。

目前研究認為,私密益生菌的效果具有菌株專一性(strain specificity)。即使屬於相同菌種,不同菌株在定殖能力、作用機制及人體臨床證據上都可能存在差異,因此挑選產品時,應優先確認是否標示完整菌株名稱,而非僅標示「乳桿菌」或強調高菌數。

目前人體研究較完整的私密健康菌株包括Lacticaseibacillus rhamnosus GR-1與Limosilactobacillus reuteri RC-14。多項隨機對照試驗及近年的系統性回顧指出,兩者搭配使用可作為細菌性陰道炎(BV)治療後的輔助策略,有助於恢復陰道乳桿菌優勢菌相,並降低部分女性的復發風險。

下表整理目前研究較多的私密健康相關菌株:

菌株主要研究方向人體研究概況
Lactobacillus crispatus CTV-05 (Lactin-V)BV、復發性 BV多項RCT,BV復發證據最完整
Lacticaseibacillus rhamnosus GR-1 + Limosilactobacillus reuteri RC-14BV、UTI、陰道菌相人體研究最多,系統性回顧支持作為輔助治療
Lactobacillus rhamnosus SP1BV、陰道菌相已有人體臨床試驗,與抗生素併用可改善Nugent score(紐根特評分)、增加乳桿菌定殖。
Lactobacillus gasseri KM97BV、陰道菌相人體研究主要來自亞洲族群,多為複方配方,對改善陰道菌相具有潛力,但大型RCT仍不足。
Lactobacillus rhamnosus IMC 501 + Lactobacillus paracasei IMC 502BV、陰道菌相義大利團隊曾發表人體研究,口服後可增加陰道乳桿菌比例、改善Nugent score(紐根特評分)。

除了具有臨床研究支持的乳桿菌菌株外,部分研究也探討其他成分在女性私密健康管理中的應用,例如:

  • 蔓越莓萃取(花青素,PACs):已有臨床證據支持可降低部分女性反覆泌尿道感染的風險。
  • D-甘露糖(D-mannose):近年研究結果不一致,部分研究觀察到對反覆泌尿道感染具有潛在幫助,但目前證據仍不足以形成一致建議。
  • 洛神花萃取:目前多數研究仍以體外或動物實驗為主,人體臨床證據相對有限,仍需更多研究確認其對私密健康的實際效果。

女性的私密健康,靠兩道彼此相連的防線守護:第一道是陰道乳桿菌,透過產生乳酸、維持酸性、競爭排除與調節免疫來壓制病原;第二道是與之相通的腸道,作為有益乳桿菌的來源。當這兩道防線變弱,感染就容易反覆發生。

私密健康並不是追求「完全乾淨無細菌」,而是維持一個平衡且穩定的微生態環境。當陰道乳桿菌占據優勢、腸道菌叢維持多樣性,並配合良好的生活習慣時,女性自身便擁有一套天然的防禦機制,協助身體抵禦外來病原菌的干擾。

參考資料

  1. Abbe C and Mitchell CM (2023) Bacterial vaginosis: a review of approaches to treatment and prevention. Front. Reprod. Health 5:1100029.
  2. Avitabile E, Menotti L, Croatti V, Giordani B, Parolin C, Vitali B. Protective Mechanisms of Vaginal Lactobacilli against Sexually Transmitted Viral Infections. International Journal of Molecular Sciences. 2024; 25(17):9168.
  3. Baliakas MH, Davies R. Carbohydrate Intake and Bacterial Vaginosis: A Systematic Review. Am J Lifestyle Med. 2025 Aug 28:15598276251367659.
  4. Carter, Kayla A. Fischer, Molly D. et al. Epidemiologic Evidence on the Role of Lactobacillus iners in Sexually Transmitted Infections and Bacterial Vaginosis: A Series of Systematic Reviews and Meta-Analyses. Sexually Transmitted Diseases 2023; 50(4): 224-235 
  5. Choi J, Thänert R, Reske K et al. Gut microbiome correlates of recurrent urinary tract infection: a longitudinal, multi-center study eClinicalMedicine, 2024; 71
  6. Chow, K., Wooten, D., Annepally, S. et al. Impact of (recurrent) bacterial vaginosis on quality of life and the need for accessible alternative treatments. BMC Women’s Health 23, 112 (2023).
  7. Djusse ME, Prinelli F, Camboni T, Ceccarani C, Consolandi C, Conti S, Dall’Asta M, Danesi F, Laghi L, Curatolo FM, Morselli S, Foschi C, Castellano P, Marangoni A and Severgnini M (2025) Dietary habits and vaginal environment: can a beneficial impact be expected?. Front. Cell. Infect. Microbiol. 15:1582283.
  8. Eleutério Jr. J, Campaner AB and de Carvalho NS (2023) Diagnosis and treatment of infectious vaginitis: Proposal for a new algorithm. Front. Med. 10:1040072.
  9. Geer K, Klega A. Vaginitis: Diagnosis and Treatment. Am Fam Physician. 2025 Nov;112(5):504-512. 
  10. Huang S,Hsu H,,Lee T, Fan H, Tseng C, Chen I, Shen H, Lee C, Tai H, Hsu H, Hung C,, 2023. Prevalence, Associated Factors, and Appropriateness of Empirical Treatment of Trichomoniasis, Bacterial Vaginosis, and Vulvovaginal Candidiasis among Women with Vaginitis. Microbiol Spectr 11: e00161-23
  11. Aggarwal N, Leslie SW. Recurrent Urinary Tract Infections. [Updated 2025 Jan 20]. In: StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2026
  12. Lobo M, Cerqueira C, Rodrigues AG, Lisboa C. Recurrent Vulvovaginal Candidosis and Its Underlying Mechanisms: A Systematic Review. Journal of Fungi. 2025; 11(5):357.
  13. Liu P, Lu Y, Li R and Chen X (2023) Use of probiotic lactobacilli in the treatment of vaginal infections: In vitro and in vivo investigations. Front. Cell. Infect. Microbiol. 13:1153894.
  14. Lyra A, Ala-Jaakkola R, Yeung N, Datta N, Evans K, Hibberd A, Lehtinen MJ, Forssten SD, Ibarra A, Pesonen T, et al. A Healthy Vaginal Microbiota Remains Stable during Oral Probiotic Supplementation: A Randomised Controlled Trial. Microorganisms. 2023; 11(2):499.
  15. Ma, S., Wang, W., Su, Y., Sun, W. & Ma, L. (2023). Antibiotics therapy combined with probiotics administered intravaginally for the treatment of bacterial vaginosis: A systematic review and meta-analysis. Open Medicine, 18(1), 20230644. 
  16. Pendharkar S, Skafte-Holm A, Simsek G, Haahr T. Lactobacilli and Their Probiotic Effects in the Vagina of Reproductive Age Women. Microorganisms. 2023; 11(3):636.
  17. Takada K (2025) IgA and the gut-vagina axis. Front. Immunol. 16:1547303.
  18. Li M, Zhang Q, Wu T, Ma L, Hu D, Yuan Z, Wang S, Luo A, Zhang J. 2025. How does gut microbiota affect the vaginitis axis? The mediating role of plasma metabolites. Microbiol Spectr 13: e02263-24.
  19. Udjianto U, Sirat NA, Rahardjo B, Zuhriyah L. Effective probiotic regimens for bacterial vaginosis treatment and recurrence prevention: A systematic review. Narra J. 2025 Apr;5(1):e1671. 
  20. World Health Organization. (2025). Bacterial vaginosis [Fact sheet].
  21. Zheng N, Guo R, Wang J, Zhou W and Ling Z (2021) Contribution of Lactobacillus iners to Vaginal Health and Diseases: A Systematic Review. Front. Cell. Infect. Microbiol. 11:792787.
  22. Verdenelli MC, Cecchini C, Coman MM, Silvi S, Orpianesi C, Coata G, Cresci A, Di Renzo GC. Impact of Probiotic SYNBIO(®) Administered by Vaginal Suppositories in Promoting Vaginal Health of Apparently Healthy Women. Curr Microbiol. 2016 Oct;73(4):483-90.

瘦素愈高愈好嗎?解析「瘦素阻抗」與「皮質醇」的代謝惡性循環

0

過去普遍認為,脂肪組織僅是身體儲存備用能量的倉庫,然而從內分泌角度來看,脂肪組織不僅負責儲存熱量,同時也是活躍的內分泌器官。它持續分泌多種荷爾蒙與訊號分子,與大腦、腸道、肝臟及腎上腺等器官維持雙向溝通,共同調控食慾、能量代謝與脂肪分布。

然而,在長期肥胖與慢性壓力的環境下,訊號持續分泌,分泌量高於正常值,但大腦卻逐漸失去解讀訊號的能力,是造成許多人明明飲食受控、體重卻難以下降的核心原因之一。

瘦素是什麼?並非「燃脂素」,而是脂肪量訊號

瘦素(leptin)是一種蛋白質荷爾蒙,早期由小鼠的肥胖基因中率先發現,原名意為「纖細」,反映了早期研究者的期待:一種能讓身體自動抵抗肥胖的訊號分子。

瘦素主要由白色脂肪組織(White Adipose Tissue, WAT)的脂肪細胞分泌,其分泌量與脂肪儲備量呈正比,即脂肪細胞越多、脂質含量越高,製造的瘦素也越多。瘦素進入血液循環後必須穿越血腦屏障(BBB)才能到達其主要作用部位:下視丘的弓狀核(Arcuate Nucleus),並與LepRb受體結合,向大腦傳遞身體所儲備能量的多寡,調整食慾行為與代謝輸出(又稱總熱量消耗,簡稱TDEE)。

瘦素的分泌具有明顯的晝夜節律:在夜晚睡眠期間達到高峰,抑制夜間食慾並加速代謝,而白天午後降至最低。此與睡眠品質及進食時段密切相關,因此睡眠型態的紊亂也是干擾瘦素分泌的原因之一。

瘦素機制正常運作下,身體趨向能量平衡:

步驟一、體脂增加,促進瘦素分泌上升,大腦收到「儲備充足」訊號

步驟二、食慾受到抑制、能量消耗微幅提升

步驟三、負回饋影響,導致體脂緩慢回落

然而,若脂肪細胞持續增加,瘦素阻抗一旦形成,此機制便開始失去功能。

下表整理瘦素的基本特性與核心功能:

特性說明
主要來源白色脂肪組織(皮下脂肪為主)
主要作用部位下視丘弓狀核(LepRb 受體),透過JAK2-STAT3路徑傳訊
核心功能向大腦回報脂肪儲備現況;抑制食慾、調升能量消耗
分泌節律夜間睡眠期達高峰,午後最低
肥胖時的表現血清濃度顯著升高,但大腦對訊號的接收與回應能力受損

一、愈胖瘦素愈高?瘦素阻抗如何讓大腦收不到飽足訊號?

發表於《New England Journal of Medicine》的人體研究證實,肥胖者的血清瘦素濃度顯著高於正常體重者,且與體脂百分比呈強正相關(r=0.85,p<0.001),而後續多項研究反覆驗證此正相關性:隨著肥胖程度上升,血清瘦素濃度同步增加,意即脂肪細胞越多,分泌的瘦素自然越多。

因此,肥胖問題並不在於瘦素「不夠多」,而是大腦已無法正常接收與回應此訊號,此現象稱為「瘦素阻抗」(Leptin Resistance)。過程與第二型糖尿病中的胰島素阻抗高度相似:荷爾蒙確實有分泌、濃度甚至偏高,但目標細胞對其反應能力已大幅下降。2024 年《Journal of Clinical Investigation》的回顧文章指出,瘦素阻抗幾乎普遍存在於大多數肥胖案例之中,被視為一種系統性的代謝缺陷。

刊登於《PLoS One》的動物實驗顯示,當人工固定肥胖小鼠的血清瘦素在低水平,即使長期餵食高脂飲食,小鼠仍維持對瘦素的高敏感性;而允許瘦素自然上升的組別,則出現顯著阻抗。因此高脂飲食本身,不足以獨立引發阻抗,高濃度瘦素才是關鍵觸發阻抗的條件。

下視丘如何決定要不要停止進食?

瘦素要發揮食慾調節作用,僅試圖「提升瘦素濃度」並不是解方,核心在於恢復大腦對於訊號的敏感度。瘦素需成功進入血腦屏障、抵達對應腦區、結合瘦素受體,並啟動受體後方的細胞訊號路徑。上述任何一環節失效,都會讓「脂肪庫存已充足」的訊息無法完整傳遞至大腦。

障礙層次機制說明結果
血腦屏障阻斷(周邊阻抗)肥胖相關高三酸甘油酯血症,抑制瘦素受體轉運效率大量瘦素滯留血液,無法進入腦部
受體去敏化(中樞阻抗)慢性高瘦素導致訊息傳遞路徑過度活化,並產生負回饋,主動封鎖受體傳訊瘦素即使入腦,神經元也難以正常回應
神經元功能受損(中樞阻抗)高脂飲食與慢性發炎誘發下視丘壓力,神經元活性下降飽足訊號強度持續弱化,越吃越多、代謝減緩
發炎與細胞壓力升高免疫細胞過度活化,釋放大量促發炎細胞激素(如 TNF-α、IL-6)進一步干擾瘦素敏感度,形成代謝惡性循環

目前臨床上雖尚未建立「瘦素阻抗」的標準診斷指標,但從大多數肥胖者的日常情境來看,難以抑制的飢餓感、對飲食控制反應遲鈍,相當程度可能是瘦素被多層阻斷機制的具體表現,而非單純的行為意志力問題。而壓力荷爾蒙(皮質醇)會更加重此現象。

二、壓力皮質醇如何介入?HPA軸讓食慾、血糖與腹部脂肪一起失衡

面對壓力時,會引起下視丘、腦下垂體與腎上腺(HPA軸)反應,促使腎上腺分泌皮質醇。正常狀態下,皮質醇遵循嚴格的晝夜節律:清醒後30至45分鐘內迅速攀升至全日高點(稱為「皮質醇清醒反應」,Cortisol Awakening Response),隨後在白天穩定下降,至夜間睡眠期降至最低值。「早高晚低」的變化,是協調全身代謝節律的核心訊號,也是維持胰島素敏感性與能量平衡的重要條件之一。

慢性壓力會系統性地破壞這個節律。HPA軸長期活化後,皮質醇分泌型態會出現明顯的「扁平化」:清晨峰值降低或延遲,而夜間本應降至最低的濃度反而異常偏高,晝夜濃度差距縮小,讓身體長時間曝露在相對偏高的皮質醇環境中,導致代謝異常,引發「壓力胖」、肌肉流失、胰島素阻抗及免疫力下降。

皮質醇與腹部脂肪堆積高度相關

內臟脂肪組織中的糖皮質激素受體(GR)密度,顯著高於皮下脂肪。意即同樣濃度的皮質醇,在腹部脂肪中能引發更強烈的反應,促進脂肪細胞分化與脂質儲存。

另一關鍵是11β-HSD1酵素(11β-羥類固醇脫氫酶第一型),負責將非活性的可體松(cortisone)轉化為活性皮質醇(cortisol),其在內臟脂肪中活性特別高。透過局部合成,內臟持續獲得較高濃度的活性皮質醇,不斷刺激脂肪細胞增生,刺激免疫細胞過度活化,釋放大量促發炎細胞激素(如 TNF-α、IL-6),進一步加重肥胖與胰島素阻抗。

瘦素與胰島素都會將身體能量狀態傳給大腦與周邊組織。當兩種訊號都變遲鈍時,就可能同時出現「脂肪量增加、飽足訊號不清楚、血糖調節壓力升高、脂肪儲存傾向增加」的代謝困境。

三、腸道菌相失衡加重代謝危機:腸漏、發炎、胰島素阻抗讓飽足訊號更不敏感

健康的腸道屏障由一層緊密連結的腸上皮細胞組成,選擇性允許營養素通過,同時阻止細菌毒素與代謝廢物滲入體循環。腸道菌相失衡會損傷緊密的連接系統,造成腸道通透性增加,稱為「腸漏」(Leaky Gut)。

腸漏形成後,革蘭氏陰性菌外膜的主要毒素成分脂多醣(lipopolysaccharide, LPS)得以進入血液循環,與內臟脂肪直接釋放的促發炎訊號形成疊加效應,加劇發炎,持續損害胰島素與瘦素的訊號傳遞效率。

多因子交互作用,形成代謝惡性循環

  • 慢性低度發炎:干擾脂肪組織、下視丘與受體後訊號傳遞。導致瘦素訊號變遲鈍、食慾調節困難、代謝壓力升高。
  • 胰島素阻抗:使血糖與脂肪儲存調節變得更費力。
  • 腸道菌相失衡:導致發炎反應、胰島素敏感度下降、能量代謝失衡。
  • 中樞(下視丘)發炎:影響大腦對瘦素與營養訊號的反應。飽足訊號下降、能量消耗調節受影響。

四、顧好腸道健康:穩定皮質醇節律與代謝平衡

慢性壓力不只透過皮質醇影響脂肪分布,HPA軸的過度活化已被證實會干擾腸道微生態的平衡,增加腸漏,並加重菌相失調的程度。反之,腸道菌相失調引起的系統性發炎,也會增加皮質醇分泌。

因此,腸道菌相的調節不只攸關消化系統本身,更是緩解系統性發炎、間接支持皮質醇節律的關鍵之一。

植物乳桿菌K21:調節脂肪代謝、降低瘦素與強化腸道屏障

在特定益生菌對於代謝調節的研究領域中,具有潛在作用的植物乳桿菌K21(Lactobacillus plantarum K21)菌株,展現相當優異的實驗結果。研究以高脂飲食誘發肥胖(DIO)的雄性小鼠為模型,分為正常飲食(ND)、高脂飲食(HFD),以及高脂飲食加每日灌餵 K21(10⁹ CFU)持續八週。主要研究結果如下:

觀察指標HFD 組HFD + K21 組
體重增加幅度顯著高於正常飲食增幅受到抑制
副睪周圍脂肪量大量累積累積量降低
血漿瘦素濃度顯著升高降低
膽固醇與三酸甘油酯升高降低
肝損傷指標(AST/ALT)升高,肝損傷明顯改善,肝損傷緩解
肝臟 PPAR-γ 表達升高顯著下調
腸道通透性受損強化,屏障功能改善

K21 菌株的介入同時觀察到多個與代謝調節相關的變化,包括降低血漿瘦素濃度、減少體重增加與脂肪累積、降低血中膽固醇與三酸甘油酯,並改善腸道屏障相關指標。其中,高三酸甘油酯可能干擾瘦素通過血腦屏障,進而影響大腦接收瘦素訊號的效率。

K21菌株並非單純「抑制肥胖」,而是透過血脂代謝、脂肪堆積、瘦素訊號與腸道屏障等多個環節,共同降低高脂飲食下的代謝壓力。當腸道屏障較完整,細菌的發炎刺激物較不易進入血液;當血脂與脂肪累積壓力下降,瘦素與胰島素訊號也較不易被干擾。

對於瘦素阻抗、腹部脂肪堆積與慢性低度發炎交織而成的代謝危機,理想的策略不應只是追求單一指標的降低,而是回到「降低代謝壓力、維持腸道屏障、支持訊號敏感度」的源頭,進行系統性的整體調節。

參考資料

  1. Adam, E. K., Quinn, M. E., Tavernier, R., McQuillan, M. T., Dawood, K., & Gilbert, K. E. (2017). Diurnal cortisol slopes and mental and physical health outcomes: A systematic review and meta-analysis. Psychoneuroendocrinology, 83, 25–41.
  2. Alzamil, H. (2020). Elevated serum TNF-α is related to obesity in type 2 diabetes mellitus and is associated with glycemic control and insulin resistance. Journal of Diabetes Research, 2020, Article 5076858.
  3. Cao N, Zhao F, Kwok LY, Wang H, Sun Z. Impact of probiotics on weight loss, glucose and lipid metabolism in overweight or obese women: A meta-analysis of randomized controlled trials. Curr Res Food Sci. 2024 Jul 14;9:100810.
  4. Banks, W. A., Coon, A. B., Robinson, S. M., Moinuddin, A., Shultz, J. M., Nakaoke, R., & Morley, J. E. (2004). Triglycerides induce leptin resistance at the blood-brain barrier. Diabetes, 53(5), 1253–1260.
  5. van Loenen MR, Geenen B, Arnoldussen IAC, Kiliaan AJ. Ghrelin as a prominent endocrine factor in stress-induced obesity. Nutr Neurosci. 2022 Jul;25(7):1413-1424.
  6. Considine, R. V., Sinha, M. K., Heiman, M. L., Kriauciunas, A., Stephens, T. W., Nyce, M. R., Ohannesian, J. P., Marco, C. C., McKee, L. J., Bauer, T. L., & Caro, J. F. (1996). Serum immunoreactive-leptin concentrations in normal-weight and obese humans. New England Journal of Medicine, 334(5), 292–295.
  7. Flier, J. S., & Maratos-Flier, E. (2024). Leptin physiology and pathophysiology: Knowns and unknowns 30 years after its discovery. Journal of Clinical Investigation, 134(2), e174595.
  8. Goldsmith, C. C., & Dodd, G. T. (2024). TET2: The fat controller of leptin. Life Metabolism, 3(3), loae019.
  9. Ķimse, L., Reinis, A., Miķelsone-Jansone, L., Gintere, S., & Krūmiņa, A. (2024). A narrative review of psychobiotics: Probiotics that influence the gut–brain axis. Medicina, 60(4), Article 601.
  10. Kuckuck, S., van Baak, M. A., & Camps, S. G. J. A. (2023). Glucocorticoids, stress and eating: The mediating role of appetite-regulating hormones. Obesity Reviews, 24 (3), e13539.
  11. Lengton, R., et al. (2025). Glucocorticoids and HPA axis regulation in the stress–obesity connection: A comprehensive overview of biological, physiological and behavioural dimensions. Clinical Obesity, e12725.
  12. Melo, H. M., et al. (2017). Triglycerides cross the blood–brain barrier and induce central leptin and insulin receptor resistance. International Journal of Obesity, 41, 1525–1534.
  13. Mishra, A. K., et al. (2023). Recent insights of obesity-induced gut and adipose tissue dysbiosis in type 2 diabetes. Frontiers in Molecular Biosciences, 10, Article 1224982.
  14. Morton, G. J., Kaiyala, K. J., Fisher, J. D., Ogimoto, K., Schwartz, M. W., & Wisse, B. E. (2010). Hyperleptinemia is required for the development of leptin resistance. PLoS ONE, 5(6), e11376.
  15. Ołoń E, Gurgul A, Szmatoła T, Jasielczuk I, Kucharski M, Zubel-Łojek J and Zieba DA (2025) Impact of modulating leptin sensitivity on the transcriptomic profile of adult-derived hypothalamic mouse neurons. Front. Mol. Neurosci. 17:1518737.
  16. Al-Juhani A, Desoky MS, Almuhaimid AA, Zaheer M, Alhaqbani HF, Abalkhail EA, Alanazi SA, Alzahrani RS, Alrefaai M, Desoky R. Efficacy of Gut Microbiome-Targeted Therapies in Modulating Systemic Inflammation and Low-Grade Chronic Inflammatory States in Adults With Metabolic Disorders: A Systematic Review. Cureus. 2025 Sep 21;17(9):e92881. 
  17. Prajna, R. H., Shivananda Nayak, Priya, V., Shruthi Rai, P., Shivaraja Shankara, Y. M., & Prashanthkumar, G. (2025). The role of TNF-Alpha, IL-6, Adiponectin, and Leptin in inflammation and metabolic dysregulation in type 2 diabetes mellitus. Pharmacognosy Journal, 17(6), 699–702.
  18. Hu W, Zhu H, Gong F. Leptin and leptin resistance in obesity: current evidence, mechanisms and future directions. Endocr Connect. 2025 Sep 29;14(9):e250521. 
  19. Nakandakare-Maia, E.T., Siqueira, J.S., Caccia, C.M. et al. Differential effects of obesogenic diets components on hypothalamic leptin resistance: a narrative review. Nutrire 51, 24 (2026).
  20. Simon C, Gronfier C, Schlienger JL, Brandenberger G. Circadian and ultradian variations of leptin in normal man under continuous enteral nutrition: relationship to sleep and body temperature. J Clin Endocrinol Metab. 1998 Jun;83(6):1893-9. 
  21. Smith W, Azevedo EP. Hunger Games: A Modern Battle Between Stress and Appetite. J Neurochem. 2025 Feb;169(2):e70006. 
  22. Wang, X., et al. (2024). Short-chain fatty acids: Bridges between diet, gut microbiota, and health. Journal of Gastroenterology and Hepatology, 39(6).
  23. Obradovic M, Sudar-Milovanovic E, Soskic S, Essack M, Arya S, Stewart AJ, Gojobori T, Isenovic ER. Leptin and Obesity: Role and Clinical Implication. Front Endocrinol (Lausanne). 2021 May 18;12:585887.
  24. Wilding, J. P. H. (2019). Leptin resistance: Underlying mechanisms and diagnosis. Diabetes, Metabolic Syndrome and Obesity, 12, 1737–1745.
  25. Wu, C.-C., Weng, W.-L., Lai, W.-L., Tsai, H.-P., Liu, W.-H., Lee, M.-H., & Tsai, Y.-C. (2015). Effect of Lactobacillus plantarum strain K21 on high-fat diet-fed obese mice. Evidence-Based Complementary and Alternative Medicine, 2015, Article 391767.
  26. Zhang, Y., Proenca, R., Maffei, M., Barone, M., Leopold, L., & Friedman, J. M. (1994). Positional cloning of the mouse obese gene and its human homologue. Nature, 372, 425–432.

延伸閱讀

壓力型肥胖怎麼減?皮質醇(壓力賀爾蒙)失調與腸道菌相失衡對代謝的影響

健檢紅字年年有?從脂肪內分泌到腸道菌:解析代謝症候群的生理成因與逆轉機制

打瘦瘦針一定會復胖嗎?解析停藥前必須啟動的生理代謝機制!

GLP-1 減重機制揭秘:不打針也能瘦?關鍵在於調節「腸道菌相」